
Биологическая история нашей планеты
Сказка про самое начало времён
Расскажу-ка я вам сказочку. Начну традиционно. Давным-давно... Ну как давно... С точки зрения вечности, совсем недавно, буквально рукой подать, а так-то весьма ощутимо. Хотя, опять-таки, что значит 5 миллиардов лет? Пустяки! В общем, 5 миллиардов лет назад жило-было маленькое (а может и не очень) облачко. Состояло облачко из газа (водорода, в основном) и пары горстей пыли. Плыло себе спокойно облачко по просторам нашей галактики, но вдруг что-то произошло. Что именно произошло, сейчас за давностью веков забылось. Может звезда какая мимо пронеслась, может сверхновая неподалеку рванула, а может и какая-нибудь чёрная дыра накосячила. В общем, облачко начало сгущаться, разогреваться и вращаться. Сгустилось, разогрелось и развращалось оно в один прекрасный момент так, что что-то вспыхнуло в его центре. Да так вспыхнуло, что стало работать огромным термоядерным реактором! Мы тогда ещё не подозревали (нас просто-напросто не было тогда), что это зажглась наша звезда по имени Солнце. А после его "возгорания" осталась куча строительного мусора, остатки нашего облачка. Этот мусор под воздействием таинственной и непонятной штуки, которую неграмотные учёные называют гравитацией, собрался в 10 колец Силы (сами себя эти кольца называли протопланетными). В этих протопланетных кольцах крутилась масса песчинок, камешек, камней и каменищ вместе с остатками газов, которые наша звёздочка в себя не впитала. И все эти частички не захотели жить порознь. Вместе им захотелось. И стали они слипаться во всё большие каменюки и газокаменюки. Получилось сначала ни то ни сё. Планетоземали какие-то...
Ещё одна сказка про начало времён
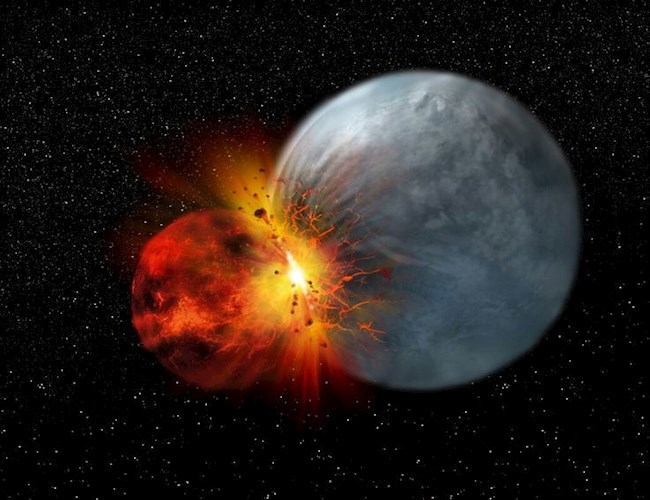
Первая наша сказка закончилась на появлении (прости, господи!) планетезималей. Так вот, скучно планетезималям стало на своих орбитах и начали они играть друг с другом. А какие могут быть игры у достаточно крупных небесных тел? Сталкиваться они стали друг с другом напропалую! А там уж кому как повезло! Кто был крупнее и массивнее, тот просто после столкновения поглощал останки своего конкурента. В итоге этих игр самые удачливые (большие и массивные) планетезимали стали планетами. Да и уже готовые планеты изначально не хотели покорно летать вокруг своей звезды. Уж очень нестабильными были их орбиты! Продолжали они, такие нехорошие сталкиваться друг с другом. Так давным-давно в окрестностях третьего протопланетного кольца умудрились столкнуться друг с другом две то ли планеты, то ли протопланеты. Столкновение произошло по касательной, но меньшее по размерам тело (Тейя) было практически разрушено, а его остатки попали в гравитационное поле более крупного (сейчас по паспорту это Земля). Что-то вошло в состав прото-Земли, а что-то было выброшено на ближнюю к ней орбиту и стало её спутником - Луной. Кто бы мог предугадать, что это столкновение позволит третей от Солнца планете стать родиной величайшего творения эволюции - Жизни! Подробности будут в следующих "сказках", а пока скажу, что наконец-то родилась наша планета. Мы её сейчас называем Земля. И после того, как на небосклоне появилась Луна, начался первый настоящий этап жизни нашей планеты. Мы его называем катархей.
Начало начал. Уже не сказка
Около 4,6 миллиардов лет назад окончательно вспыхнул и заработал термоядерный источник энергии посреди будущей нашей звёздной системы. Появилась звезда по имени Солнце. После этой вспышки остатки вещества первичного звёздного облака начали концентрироваться вокруг "колец силы", то есть областей, в которых гравитация стягивала эти самые остатки в подобие реальных колец. В будущей Солнечной системе таких колец образовалось десять. Из материала восьми из них образовались современные планеты. Первое кольцо оказалось несчастным. Уж слишком силён здесь был солнечный ветер (жёсткое ионизирующее излучение родной звезды) и прочие излучения. Порывы этого ветра умудрились снести не только первичную атмосферу зародившейся планеты, но её так и не успевшие перейти в твёрдую фазу слои литосферы. В итоге получился небольшой, но очень плотный Меркурий. Эта планета близка к родной звезде и изначально не была пригодна для любых форм жизни. Из материала второго кольца получилась планета Венера. Изначально планета вышла весьма неплохой. Только-только разогревающееся Солнце обеспечивало вполне комфортные температуры. В далёком прошлом Венеры вполне могли быть жидкие океаны, вулканическая активность и прочие активности, которые могли бы (в свою очередь!) обеспечить возникновение жизни. Но, простите, не срослось. Какой-то импакт (большое ударное столкновение) резко замедлил вращение планеты. В итоге, венерианский год (период обращения планеты вокруг Солнца) меньше венерианских суток (периода обращения планеты вокруг своей оси). Резко замедленная планета получила в итоге ад на своей поверхности: температура около 460-500 градусов по Цельсию, огромное атмосферное давление, ядовитая атмосфера, состоящая преимущественно из углекислого газа и сероводорода. Третье кольцо - это кольцо планеты Земля. Наша планете повезло. В основном за счёт того, что на этапе формирования планет в прото-Землю врезалась ещё одна прото-планета размером примерно с Марс. Её обычно называют Тейя. В результате столкновения образовалась уникальная пара Земля-Луна. У прочих планет земной группы (1-4 протопланетное кольцо) спутников или вообще нет, или они очень мелкие. Земной же спутник весьма и весьма крупненький (четверть диаметра "материнской" планеты и 1/81 часть массы). Близкий крупный спутник стабилизировал вращение планеты и замедлил его, периодически "перемешивал" её поверхность, не давал прекращаться вулканической и тектонической активности. Вполне возможно, что будь у Венеры своя "луна", та не превратилась бы в раскалённый ад, а стала подобием Земли.
Катархей. С чего всё начиналось
4,54 миллиарда лет назад наша планета сформировалась как небесное тело и начался отчёт дней её жизни. Времена были тяжёлые и неуютные. По всей Солнечной системе носились обломки, оставшиеся от эпохи её формирования. Причём обломки эти были весьма крупные и могли даже достигать размеров вполне себе приличной планеты вроде Марса. Большую часть таких обломков притянул к себе и "пожрал" гигант Юпитер, но кое-что досталось и внутренним областям системы.
Около 4,5 миллиардов лет назад такой увесистый обломок и врезался в Землю-младенца. Его сейчас часто называют Тейей. Гигантское столкновение выбросило в космос огромные массы вещества, которые затем под воздействием гравитации начали стягиваться вместе. Большую его часть поглотила наша планета, а из остатков сформировался удивительно крупный для небольшой каменистой планеты спутник - Луна. Первоначально она находилась очень близко к поверхности Земли - не далее 17 тысяч километров, но стремительно (около 10 км в год) удалялась.
Такой крупный и массивный спутник замедлял вращение планеты (сутки на юной Земле длились всего около 6 часов) и не давал успокоиться её недрам. А недра планеты в начале катархея начали процесс дифференциации. Тяжёлые металлы опускались к центру, лёгкие силикаты поднимались вверх. Сформировались тяжёлое металлическое ядро и мантия, начала появляться ещё очень тонкая, постоянно разрываемая волнующимися недрами, кора. От этой коры практически ничего не осталась к нашим временах. Она почти вся отправилась в переплавку. Лишь на востоке современной Канады были обнаружены магматические породы возрастом около 4,4 миллиарда лет.
Самое интересное, что примерно теми же сроками датируется и существование на планете жидкой воды. Откуда же она могла там взяться, если вся поверхность планеты представлялась совсем недавно сплошным волнующимся океаном магмы? Вернее, откуда вода взялась, это понятно. Из космоса, конечно, вместе с обломками космического мусора. Вопрос в том, как она сохранялась в жидком виде. Представления о поверхности планеты пришлось пересмотреть. Тонкая кора, видимо, всё-таки покрывала всю её поверхность, хотя её и разрывало периодически продолжающимся сыпаться сверху "мусором" и гравитационным воздействием близкой Луны.
То есть "ложе" для воды было. Но, правда, и настоящей "правильной" водой эту жидкость было назвать сложно. Она была перегретой до более чем 200 градусов и перенасыщенной различными растворёнными в ней веществами, в том числе и органическими. Выкипанию этой "воды" препятствовало очень высокое атмосферное давление (по последним данным в 40 раз превышающее современное). Создавала такое давление тяжёлая и мощная первичная земная атмосфера, состоящая преимущественно из углекислого газа, метана, аммиака, водяных паров и сероводорода.
В общем, неуютным был мир ранней Земли. Очень горячим, душным и мрачным, так как лучи неразогревшегося ещё толком Солнца лишь с трудом пробивались через плотную атмосферу с многокилометровыми облаками. К концу эона (около 4 миллиардов лет назад) стало полегче. Планета подостыла, перестала крутиться бешеным волчком (Луна виновата!), атмосфера постепенно теряла тяжёлые газы. На Земле начали складываться условия для появления настоящего чуда - жизни. Но это произошло уже в следующем эоне - архее.
Эоархей. Время, когда началась жизнь
Эоархей (4-3,6 миллиарда лет назад) - это первая "настоящая" геологическая эра. Эра нового эона, названного археем ("древнейшим"). Почему она была "настоящей"? Да потому, что именно в эоархее образовалась "настоящая" постоянная земная кора. Закончилась эпоха формирования планеты. Тяжёлые металлы ещё в катархее опустились к центру планеты. Образовались жидкое внешнее и внутреннее твёрдое ядра. За счёт "ядрёных" (ядерных) конвективных потоков расплавленного металла от твёрдого (за счёт огромного давления) раскалённого ядра к мантии, состоящей уже из относительно лёгких силикатных пород, зародилось движение во внешнем жидком ядре.
За счёт передвижения огромных масс практически вырожденного металла Земля обзавелась весьма мощным для такой небольшой планеты магнитным полем. Это поле в самом начале эоархея прикрыло юную планету от губительных космических излучений. Вкупе с мощной первичной атмосферой это обеспечило Землю очень толстой изолирующей подушкой от внешних воздействий. Только это чудо и очень близкий крупный спутник позволили Земле избежать участи соседней Венеры и стать раскалённым безводным адом.
Плотная защита позволила планете сохранить свою воду в жидком (пусть и перегретом состоянии), не дать распасться на составляющие сложным органическим веществам, содержащимся в первичных мелководных, сильно перегретых океанах. А близкий крупный спутник не позволил остановиться зарождавшейся тектонике первых континентальных плит. Да, в начале эоархея (собственно, в конце катархея) начали образовываться первые постоянные континентальные плиты! Были они ещё очень тонкими, хрупкими и норовили постоянно вновь опуститься в мантию, лишившись новорожденного гранитного слоя.
Большинство этих зачатков современных материков (кратонов) так в эоархее и поступили (нырнули обратно в мантию). Но небольшая часть той, самой древней на Земле постоянной коры, до сих пор красуется на поверхности планеты, имея древность 3,8 - 4 миллиарда лет. Эти кусочки первоначальной коры мы сейчас можем наблюдать на севере планеты: на западном и восточном берегах Гренландии, восточном берегу Канады и западном берегу Белого моря в Карелии. Крупнейшим из этих осколков древней коры является формация Исуа на юго-западном берегу нынешней Гренландии. Ближе к концу эры таких кусочков стало уже немало, и на границе эоархея и палеоархея начал формироваться первый (гипотетический, правда) суперконтинент Ваальбара.
Честно говоря, неуютным был мир эоархейской Земли. Было жарко за счёт парникового эффекта, создаваемого тяжёлой, насыщенной углекислотой атмосферой, и продолжающейся естественной радиоактивностью. Было душно - в атмосфере практически отсутствовал свободный кислород. С неба продолжали падать немаленькие каменюки (в начале эоархея земля пережила период так называемой поздней тяжёлой бомбардировки). И в этих условиях появилось чудо-чудное и диво-дивное - жизнь. Причём жизнь уже достаточно сложно организованная.
В Гренландии обнаружены ископаемые строматолиты возрастом около 3,7 миллиарда лет. А строматолиты - это уже не просто жизнь, а целая сложившаяся экосистема, состоящая из различных бактерий. Причём среди них присутствуют уже достаточно сложно организованные цианобактерии, освоившие оксигенный фотосинтез. А что это значит? А то, что жизнь уже существовала и достаточно длительное время развивалась. Скорее всего, первые жизненные формы появились ещё в катархее, а в архее они эволюционировали в одноклеточных прокариот, ныне представленных бактериями и археями. В принципе, именно непритязательные и размножающиеся с бешеной скоростью представители этих двух царств и могли выжить в неуютном мире эоархея. Что и доказывается палеонтологической летописью. Времена для более сложных организмов ещё не настали.
Палеоархей. Когда рождались континенты
Палеоархей - это вторая геологическая эра архейского эона. Начался палеоархей 3,6 миллиарда лет назад и продолжался 400 миллионов лет. Луна продолжала стремительно удаляться от Земли (к концу эры улетев почти на 150 тысяч километров). Удлинялись сутки, то есть замедлялось вращение планеты. Их продолжительность 3,2 миллиарда лет назад составляла уже более 15 часов. Окончательно оформились твёрдое внутреннее и жидкое внешнее ядра планеты. Начало без перебоев работать магнитное поле, достигнув примерно половины современной мощности. Но самые интересные события палеоархея происходили на планетарной поверхности.
Планета подостыла, что позволило окрепнуть тонкой постоянно разрываемой восходящими потоками из мантии коре. Вот только все земная кора на заре истории планеты была только и исключительно океанического типа. Не надо думать, что вся поверхность планеты в те далёкие времена была покрыта мелководным океаном, над которым возвышались одинокие острова-вулканы (хотя такая версия существует и имеет право на жизнь). Скорее всего, большая часть планеты была сушей, на которой и плескались эти мелководные океаны с перегретой, перенасыщенной различными веществами (в том числе и органическими) водой.
Как же так? - спросите вы, - суша и вдруг океаническая кора? Современная кора океанического типа действительно представлена на дне океанов, отсюда и название. Только дело не в том, где представлена, а в том, как образуется и из чего состоит. Современная океаническая кора (эх, повторюсь!) образуется в районе срединных океанических хребтов (места "слабости" на стыке тектонических плит), буквально изливаясь из мантии. Эти "излияния" состоят преимущественно из базальтовых пород. Базальты и им подобные породы и образуют молодую океаническую кору. Более старую начинают покрывать породы осадочные, которые образуются в результате абиогенных процессов (типа вымывания), а также в результате деятельности живых существ.
Естественно, никакой тектоники плит вовсе не существовало в катархее и большей части архея, так как никаких плит-то тогда и не было. Зато "слабых" мест, где прорывалось вещество мантии (магма) в первичной земной коре было полно. И эти "прорывы", и сама первичная кора, которая по сути и есть застывший верхний слой мантии, были полностью "океаническими" по составу, то есть преимущественно базальтовыми. Континентальная кора, которая образует современные континенты и континентальные шельфы в морях и океанах, имеет совсем другой состав и историю образования. "Подложка" её в основе та же базальтовая, но с весьма значительной примесью метаморфических (то есть вторично подвергшихся обработкой высокого давления и температуры) пород.
Над условно базальтовой подложкой в континентальной коре находится гранитный слой. Изначально это были те же самые базальты, то есть вещество мантии, но они так и не смогли дойти до поверхности по разным причинам. Остывать и кристаллизироваться они были вынуждены на достаточно значительных глубинах при немалом давлении и температуре. Именно под ними и образовывалась базальтовая подложка. Весь этот бутерброд выталкивался наверх следующим восходящим магматическим потоком, а потом покрывался осадочными породами. Как так получалось, что вещество мантии не могло достигнуть поверхности? Сейчас это происходит потому, что магматический поток просто упирается в уже сформировавшуюся очень толстую континентальную кору. Её средняя толщина 35-45 километров, а под горными массивами она может достигать 150 километров.
В архее препятствием могли служить или сильно остывшие слои первичной океанической коры, или подостывшие в движении вверх сами мантийные потоки. В любом случае, сильно подостывшая поверхность планеты буквально толкала к образованию коры нового типа - материковой. Материки и не стали откладывать дело на потом и начали зарождаться в тех местах, где мантийные слои были попрохладнее. Этот процесс начался ещё в эоархее, когда континентальная кора начала зарождаться на территориях современных Гренландии, северо-востока Канады и Карелии. В конце эоархея она начала появляться и на юге (хотя расположение тех зачатков материков - кратонов мы сейчас можем только угадывать) - на территории современной Южной Африки и Австралии.
А в течение палеоархея эти кусочки континентальной коры начали проявлять способности к объединению. Более лёгкие (за счёт включений в базальтовую подушку и сверху лежащего гранитного слоя) и обладающие "килем", опускающимся в мантию, микроматерики-кратоны начали буквально плавать в этой самой мантии. Так в палеоархее зародилась тектоника плит (континентальных и океанических). А в результате этой самой тектоники из маленьких кусочков начал собираться первый супер-континент Земли - Ваальбара. Был он небольшим, уступая в размерах нынешней Гренландии, а "собирался" из кусочков, которые сейчас составляют части Южной Африки и Западной Австралии.
Самые древние куски континентальной суши (Исуа в Гренландии, большая часть нынешней Карелии и крайний северо-восток материковой части Канады) в первый суперконтинент не вошли, оставаясь независимыми небольшими островами. Зато они стали основами будущих "северных" материков Земли: Евромерики и Балтии (потом Лавразии). Ваальбара же в последующем стал основой южной Гондваны. Растущие материки всё больше и больше поддерживали возникшую и развивающуюся жизнь. Поддерживали за счёт создания затапливаемых водой материковых шельфов. Земля остывала и наличие таких прогретых Солнцем жизненных заповедников приобретало всё большее значение.
Мезоархей. Планета-океан
Мезоархей, как и предыдущие эры архея продолжался ровно 400 миллионов лет. Начался он 3,2 миллиарда лет и закончился 2,8 миллиарда лет назад. Особенность Земли в это время стало то, что она стала планетой-океаном. Юная океаническая (базальтовая) кора наконец-то подтвердила своё название. Почти всю поверхность планеты покрыли воды неглубокого ещё океана. Откуда же взялось столько воды, ведь ещё в эоархее на Земле плескались только небольшие моря? Частично эта вода прибыла вместе с обломками, оставшимися от "строительства" Солнечной системы, во время "Поздней тяжёлой бомбардировки" случившейся в начале палеоархея, но в основном выделилась из собственных земных недр.
И чем больше планета переставала напоминать напоминать горячий ад, тем больше воды появлялось на поверхности из мантии. Да, планета остывала и остывала достаточно стремительно. Причём до такой степени, что в конце мезоархея случилось первое в истории планеты оледенение - понгольское. Постойте, - скажете вы, - а как следы этого обледенения обнаружили? Ведь сие можно сделать только на суше? А ведь была суша-то, была! Причём "настоящая", то есть сложенная корой не океанического, а материкового (гранитного) типа. Волны планетарного океана не гуляли свободно по всей поверхности планеты. Периодически им приходилось натыкаться на вулканические острова, а то и настоящие континенты, правда, маленькие.
Зачатки современных континентальных плит - кратоны, появились ещё в предыдущие эры архейского эона, а в мезоархее упорно и сосредоточенно росли. В начале эры самым крупным куском суши был континент Ваальбара, объединяющий тогда кусочки современных Африки и Австралии, размером примерно с Мадагаскар. В принципе, для того времени он мог считаться настоящим супер-континентом. Ещё несколько островков континентальной коры только-только готовились превратиться в Восточную Канаду, Северную Европу и восточную часть Гренландии. К слову, не стоит думать, что тогдашние зачатки материков находились там же, где сейчас их "потомки" находятся.
Континентальная (гранитная) кора значительно легче океанической, сложенной их тяжёлых базальтов. При этом, в местах соприкосновения более массивная океаническая кора так и спешит поднырнуть под более лёгкую материковую, опустившись на переплавку в мантийные слои. Получается, что материки буквально плавают в верхних слоях мантии (астеносфере). Так что любой современный кусок суши немало помотало по всему земному шарику, прежде чем он занял современное место. Да и в будущем тоже мотать будет изрядно. Так и сейчас Австралия с небывалой для материка прытью движется на свидание с Евразией, а Африка стремится навстречу Европе, намериваясь окончательно "закрыть" Средиземное море.
Так что в далёкие времена мезоархея нынешняя Карелия (весьма древний кратон) вполне себе могла находиться на экваторе, а нынешняя Южная Африка (именно там найдены следы понгольского оледенения) - в районе современной Антарктиды. Весь мезоархей площадь материков увеличивалась ударными темпами. За 400 миллионов лет эры она возросла с чуть более 700 тысяч квадратных километров до 30 миллионов, достигнув примерно 1/5 современного значения. Больше трети тогдашней материковой коры к концу мезоархея собралось в районе экватора в супер-континент (второй по счёту!) Ур. Он долгие миллионы лет был единым массивом суши, но распад истинного суперконтинента Пангеи всё-таки разорвал его на составные части. Ныне части древнего материка входят в состав современных Африки (включая Мадагаскар), Австралии, Индии и совсем чуть-чуть Азии (Западной).
В мезоархее окончательно закончились процессы формирования планеты и начались процессы её эволюции.
Неоархей. Жизнь начинает влиять на планету
Неоархей (2,8 - 2,5 миллиарда лет назад) - последняя эра архейского эона. Земля окончательно закончила эпоху своего формирования и приступила к эволюционному развитию. Изменялась же планета просто стремительно. Быстро продолжала формироваться кора континентального типа. К концу архейского эона она достигла значений чуть меньше современных. Правда, суши было не в пример меньше. Ну это уже особенности геологии. В неоархее Земля была довольно ровной планетой, без особых возвышенностей и без глубоких впадин, поэтому мелководный океан заливал и те места, что были покрыты уже корой материкового типа. В принципе, и сейчас подобное наблюдается. Общая площадь материковой коры на четверть с лишним превышает площадь существующих материков.
Мезоархейский супер-континент Ур в неоархее продолжал собирать куски материковой коры в единое целое. На свет появился уже не гипотетический, а вполне реальный Кенорленд. Южный Ур всё-таки сподобился встретиться с северными кратонами. Или это южные кратоны встретились с северным супер-континентом. За давностью лет это понять невозможно, даже если проследить все палеомагнитные и прочие изменения. Уж слишком сильно все современные куски суши помотало по планете на протяжении её истории. Ядром Кенорленда, тем не менее, стал не Ур (Западная Австралия и нынешняя территория пустыни Калахари в Южной Африке), а более древние, но не спешившие к объединению куски будущих Лаврентии и Балтии (Восточно-Канадский, Гренландский и Балто-Скандинавский щиты).
Сильно изменилась в течение мезоархея и неоархея вода, покрывавшая поверхность планеты. Из весьма прилично нагретой, пересолёной жидкости, с кучей растворённых в ней веществ, она почти превратилась в знакомую нам морскую воду. И цвет сменился с ядовито-зелёного на привычные нам оттенки голубого и синего. Океан стремительно очищался от соединений железа, серы, меди и прочих элементов. Они связывались в виде оксидов и опускались на морское дно, образуя нынешние залежи различных полезных руд. Так, Курская магнитная аномалия - это всего-навсего дно неоархейского моря или мелководного океана, а километровые залежи железных руд были созданы именно в те далёкие времена, когда соединения железа осаживались из воды.
А осаживаться они могли (в виде оксидов) только по одной причине: на планете появился свободный кислород. А виной тому стало развитие жизни на Земле. А развивалась она более миллиарда лет к началу неоархея. Примитивные прокариоты совершили огромный рывок вперёд со времён эоархея, когда они впервые появились. Они сначала научились создавать первые биосообщества, преобразующие условия существования вокруг них. Затем часть прокариот смогли освоить оксигенный фотосинтез, то есть способ добычи органических веществ из неорганических при помощи энергии солнечного света, при котором побочным продуктом является свободный (молекулярный) кислород.
Этот кислород, который выделяли укротившие хлорофилл цианобактерии, и стал преобразователем гидро- и атмосферы неоархея. Океан очистился от кучи различных соединений и перестал быть кислотным по своей сути. Атмосфера потеряла большую часть состава атмосферы первичной. Ушли в прошлое водород, метан и более тяжёлые углеводороды, стремительно стало снижаться количество углекислого газа. Лишившись толстой теплоизолирующей подушки, планета начала стремительно остывать, что было не так уж и плохо на фоне разогревающегося Солнца. В атмосфере начал накапливаться свободный кислород. Его было ещё очень мало, но даже такая концентрация весьма сильно аукнулась биосфере планеты очень быстро после окончания архея.
Сидерий. Жизнь сама виновата в своих проблемах
Сидерий - это первый период палеопротерозойской эры. Начался он 2,5 миллиарда, а закончился 2,3 миллиарда лет назад, продолжавшись, таким образом 200 миллионов лет. Уже долгие и долгие годы, тысячелетия и миллионолетия на планете развивалась жизнь. В своём развитии она прошла много стадий, но все в короткой статье не опишешь, это тема отдельного большого цикла. Но поверьте, жизнь пробежала за полтора миллиарда лет своего развития огромное расстояние. Основным, пожалуй, её достижением стало "приручение" особыми высокоразвитыми бактериями хлорофилла - одного из сложных порфиринов, который очень хорошо может поглощать и передавать энергию солнечного света.
"Прирученный" хлорофилл позволил этим бактериям (цианобактериям) осуществлять процесс оксигенного фотосинтеза, то есть "приготовления" органических веществ из того, что всегда под рукой - углекислого газа и воды. Побочным продуктом этого процесса является свободный (молекулярный) кислород, к слову, являющийся страшным ядом для подавляющего большинства архейских живых существ. Но в архее в этом проблемы ещё не было. Весь выделяющийся кислород использовался для окисления целой кучи соединений, растворённых в архейских океанах. Но уже в конце архея проблемы возникли, а в сидерийском периоде палеопротерозоя доросли до катастрофы.
Уж слишком хорошо работали цианобактерии, выделяя и выделяя кислород. Сначала они навыделяли его столько, что отправили на дно океанское практически все растворённые в воде соединения серы и железа. Без первых невозможен процесс аноксигенного фотосинтеза (без выделения кислорода) у многих бактерий и архей и хемосинтеза (о нём как-нибудь потом) серобактерий и сероархей. Без вторых невозможен хемосинтез железобактерий и железоархей. Эти представители живого мира оказались посаженными на голодный паёк. Но кислород цианобактерии не перестали выделять!
И в конце концов он, очистив океан, начал накапливаться как в воде, так и в атмосфере. И это и стало началом катастрофы, которую потомки выживших назовут Кислородной. К середине сидерия кислорода накопилось столько, что он стал занимать более 2% в составе атмосферы (примерно десятая часть от современного уровня). 99% живых существ, которые не использовали кислород в своём метаболизме, не выдержали такого количества яда и издевательства над своими чувствами и отправились в мир иной. 1% выживших отчаянно искали на планете места, где нет ненавистного кислорода. Их они нашли в местах подводного вулканизма, где, к слову, и сейчас вполне благополучно обитают.
Те же, кто уже успел приспособиться к кислороду (цианобактерии, бактерии и археи с кислородным метаболизмом) получили огромный шанс для эволюционного развития. К слову, они не замедлили им воспользоваться. Но об этом как-нибудь в других "сказках" канала. Пока сделаем вывод, что выживших было немного и именно эти немногие и дали основу всей дальнейшей земной жизни, в том числе и нас с вами. Проделками вроде Кислородной катастрофы живые организмы не ограничились. Впереди ждала ещё одна катастрофа. Фотосинтезирующие цианобактерии упорно убавляли количество углекислого газа в атмосфере. Им он был нужен для банально покушать.
Вот только углекислый газ служил и служит газом парниковым, то есть удерживающим тепло у поверхности планеты. Более эффективные в этом плане углеводороды уже давно распались и преобразовались не без помощи тех же фотосинтетиков. У Земли остались только углекислота и водяные пары. Эти газы и так не справлялись с удержанием тепла у планетарной поверхности, а тут их становится всё меньше и меньше. В общем, вслед за Кислородной катастрофой началась катастрофа климатическая. Планета, буквально недавно (с точки зрения планетарного возраста) бывшая перегретым адом, стремительно влетала в свой первый ледниковый период.
Гуронское оледенение (названное так по месту нахождения своих геологических свидетельств) началось при совпадении множества факторов (как говорится, так срослось). Во-первых, жар солнечного реактора ещё не вышел на нужный уровень (излучение раннепротерозойского Солнца было примерно на 25% меньше современного). Во-вторых, деятельность живых организмов на Земле привела к катастрофическому уменьшению "согревающих" парниковых газов. В-третьих, планета уже потеряла "ударное" тепло ранних времён своей жизни, да и тепло радиоактивное сильно уменьшилось после окончательной дифференциации недр. В-четвёртых, Луна уже весьма изрядно отдалилась от планеты и уже не так сильно взбаламучивала её недра. В-пятых (это фактор сильно зависит от двух предыдущих), сильно уменьшился вулканизм, а значит и поступление парниковых газов в атмосферу.
В общем, совпало много факторов, а в итоге планета начала замерзать. Замёрзли полностью первые материки. Замёрзли их окраины, залитые тёплыми мелководными морями, которые были и остаются колыбелью жизнью. Начал с полюсов замерзать и единый пока для планеты океан. В принципе, ничего не мешало его полному замерзанию. Тектоника плит пока ещё только расшевеливалась, так что этот океан был мелким (пока неоткуда было взяться глубоководным желобам) и мог банально промёрзнуть до дна. Полностью планета не замёрзла, но период Гуронского оледенения стал самым длительным в её истории.
Живые организмы сами себя наказали своим эволюционным развитием. Пришлось несколько откатить назад. К концу сидерия разнообразие жизненных форм сильно снизилось, а жизнь отступила в относительно тёплые места. Дополнительным требованием для живых организмов конца сидерия был поиск богатых кислородом мест. Уровень кислорода в результате оледенения сильно упал. Аноксигенные бактерии и археи не воспользовались этим преимуществом, оставаясь в районах подводных вулканов, а оксигенные предпочли поиск так называемых "кислородных карманов", то есть мест, где кислорода было побольше, чем в других.
Риасий. Льды, вулканы и габонионты
Риасий (или рясий) - второй период палеопротерозойской эры. Начался 2,3 миллиарда лет назад, а закончился спустя 250 миллионов лет (2,05 миллиарда лет назад). Большую часть периода весьма существенную территорию планеты покрывали льды, достигая весьма приличной толщины на полюсах, в морях умеренных широт и на многих многочисленных тогда маленьких материках, стайками разбежавшихся от расколовшегося в самом начале риасия супер-материка Кенорленда. Масштабное Гуронское оледенение началось ещё в предыдущем периоде (сидерии) и продолжалось 300 миллионов лет.
Планета тогда имела все шансы замёрзнуть навечно, но её спасли малая площадь существующей суши и просто бешеный вулканизм, вспыхнувший после распада Кенорленда. А вулканы в риасии разыгрались не на шутку! Недаром даже название периода происходит от греческого ῥύαξ - "поток лавы". Эти потоки лавы буквально заливали небольшие материки, на глазах создавали новые острова. Вещество магмы активно вторгалось в земную кору, где-то выходя на поверхность, а где-то застывая и кристаллизуясь на глубине. Такие образования, сложенные из магматических пород, ворвавшихся в земную кору и напоминающих столбы, уходящие вблубь, или линзы, называются интрузиями. Современному человечеству они предоставляют целые залежи редких и благородных металлов, а также множество других минералов, до которых было бы весьма непросто добраться, если бы интрузивные тела не выносили бы их чуть ли не на поверхность.
Помимо всего прочего вулканы выбрасывали в атмосферу немалое количество парниковых газов. Их количество в атмосфере начало накапливаться. Планетная температура стала расти. Земля очень медленно стала выходить из ледникового периода. На начало риасия содержание углекислого газа в атмосфере едва превышало 10%, в его конце стало почти 17%. 2,3 миллиарда лет назад среднепланетная температура была чуть выше 5 градусов по Цельсию, 2,1 миллиарда лет назад она достигла уже 20 градусов, что превышает современные показатели (14,9). Это ознаменовало конец Гуронского оледенения. На планете потеплело, но вот жизни был нанесён огромный удар. Резкое снижение уровня кислорода в атмосфере (с 2 до 0,7%) привёл к событиям, обратным Кислородной катастрофе сидерия. То, что происходило с жизненными формами с кислородным метаболизмом в риасии можно назвать Бескислородной катастрофой.
Жизнь попряталась в тех уголках планеты, где было потеплее и где можно было найти немного лишнего кислорода для получения энергии. Такие места сейчас принято назвать "кислородными карманами". И вот в самом конце Гуронского оледенения в одном из этих "карманов" образовалось чудо-чудное и диво-дивное! На территории современного Габона, который 2,1 миллиарда лет назад был дном мелководного и относительно тёплого моря, были найдены удивительные организмы, которые учёным до (и после, кстати, тоже) этого не попадались. Просто представьте, все живые организмы тогда были микроскопическими и только цепочки цианобактерий ещё можно было разглядеть невооружённым взглядом в виде очень тонких зелёных нитей. И тут вдруг на дне моря сидит (а возможно и ползёт) настоящий супергигант, достигающий аж 12 сантиметров в поперечнике!
Кем были эти представители так называемой Франсвильской биоты до сих пор непонятно. Учёным пока остаётся только ломать копья в бессильных попытках добраться до истины, тем более, что нигде больше подобных (или даже не подобных) организмов такой сложности, величины и древности найдено не было. Они могли быть чудовищно разожравшимися бактериями или археями. Они могли быть колонией бактерий или архей. Они могли стать попыткой прокариот создать многоклеточность. Они могли представлять собой даже эукариотический организм. Правда до появления первых подтверждённых эукариот оставалось ещё 300 миллионов лет и больше миллиарда до появления первых многоклеточных организмов. Вот такая загадка загадок, смущающая учёные умы.
Кем бы не были габонионты, они при своих размерах и сложности, должны были потреблять в своих обменных процессах просто неимоверное для палеопротерозоя количество кислорода. Где взяли? Да повезло просто! Конец Гуронского оледенения ознаменовался так называемым событием Ломагунди - резким кратковременным взлётом содержания кислорода в атмосфере, связанным с активным таянием ледников. Событие это оказалось действительно кратковременным в масштабах периода. Содержание кислорода вскоре снова упало и представители Франсвильской биоты вымерли.
Орозирий. Выше гор могут быть только горы
Орозирийский период или орозирий - это третий период палеопротерозойской эры, который начался 2,05 миллиарда лет назад и закончился 1,8 миллиарда лет назад. На русский язык название периода можно перевести как "горный хребет". Название достаточно прозрачное и прямо указывает на то, что во времена данного периода происходило активное горообразование. Причём происходило оно весьма активно на всех существующих тогда континентах. А их было немало. Причём все были такого небольшого размера, что вполне заслуживали название микро-континентов.
В приэкваториальной Фенносарматии полезли вверх Скандинавские горы (современный южный участок), а в Скифии - Донецкий кряж. В близкой и такой же приэкваториальной Ангариде начали расти горы современной Восточной Сибири. Активно горы образовывались на тех древних участках земной коры, что сейчас составляют юг Африки (тогда находился где-то в районе современной Камчатки), окраины австралийского континента (он был значительно севернее, чем сейчас), северо-восток Южной Америки и почти всю Восточную Антарктиду.
А где-то в районе современной канадской провинции Квебек и вовсе столкнулись и подняли вверх горы аж девять микро-континентов, образовав уже что-то приличное по размерам - континент Лаврентию. Собственно говоря, начал формироваться очередной супер-континент планеты - Колумбии, максимальная "сборка" которого пришлась как раз на самый конец орозирия. Стоит, конечно, отметить, что Колумбия так никогда и не стала почти единым материковым массивом, как, к примеру, карбоно-триасовая Пангея, а оставалась архипелагом близко расположенных друг к другу весьма крупных островов (та же Лаврентия превышала размерами современную Антарктиду). А в узких проливах между этими островами уже возникли первые срединно-океанические хребты. Возникновение и поглощение океанической коры стало упорядоченным.
Большинство учёных сейчас считают, что такие масштабные тектонические процессы возникли не просто так, а в результате какого-то воздействия. Небезуспешно в этом подозреваются творцы двух очень крупных астроблем (следов падения метеоритов) в Канаде и Южной Африке. Канадский астероид в Садбери породил кратер в 250 км в поперечнике и снабдил Канаду и США на долгие годы медно-никелевыми рудами. Южноафриканский кратер Вредефорт был уже 300 км. Его автор считается "поставщиком" для ЮАР и рядом расположенных стран залежей золота и алмазов. Каждый из этих метеоритов, к слову, минимум в два раза превосходил размерами тот, что вызвал появление Чиксулубской астроблемы, и сильно поспособствовал вымиранию динозавров.
Несмотря на летящие с неба огромные металло-каменюки, жизнь на планете продолжала развиваться. Опомнившись после последствий Гуронского оледенения фотосинтезирующие цианобактерии с удвоенной силой начали поставлять в атмосферу и гидросферу Земли свободный кислород. Сначала он окончательно осадил на дно морское в виде окислов почти все соединения серы, железа и многих прочих растворённых в воде веществ. Этим, кстати, сделал большое доброе дело для будущего человечества, "приготовив" ему огромные залежи железных и прочих руд, основы которых составляют окислы. Так, огромная по залежам железной руды Курская магнитная аномалия - это всего-навсего дно мелководного моря между микро-континентами Фенносарматией, Скифией и Волгоуралией, на котором миллионами лет осаждалось из воды железо.
Затем цианобактерии наполнили мир кислородом настолько, что не могли не возникнуть организмы, которым кислорода, в связи с более сложным строением и более крупными энергозатратами, требовалось намного больше. Этими организмами стали одноклеточные эукариоты. В отличии от предыдущих, крайне просто устроенных, живых обитателей планеты, эукариоты имели весьма сложное внутреннее строение. У прокариот (ранее все они относились к бактериям) всё просто: клеточная мембрана, цитоплазма внутри, да в этой цитоплазме генетический аппарат (бактериальная хромосома в безоболочечном нуклеотиде и внехромосомные плазмиды), да рибосомы, отвечающие за синтез необходимых белков. Самые продвинутые из бактерий - цианобактерии - ещё и зёрна хлорофилла имеют, для осуществления фотосинтеза.
Эукариотические клетки устроены намного сложнее. Под их клеточной мембраной (которая ещё и клеточной стенкой бывает прикрыта) располагаются многочисленные органоиды/органеллы (всё равно, что органы внутри организма). Они бывают немембранными и мембранными. К первым относятся потомки обычных белковых тяжей в цитоплазме прокариот (аппарат Гольджи, эндоплазматическая сеть), которые у эукариот знатно проэволюционировали. Вторые (ядро (хранилище генетической информации), митохондрии, пластиды) - имеют собственные мембраны внутри клетки и собственный же генетический аппарат. В цитоплазме каких-то следов генетического аппарата не наблюдается. Он полностью сосредоточен в мембранных органеллах. А уж в митоходриях и пластидах, так и вовсе независим от "основного".
Эукариотические клетки намного крупнее прокариотических (в 10-1000 раз) и намного более сложно устроены, как морфологически, так и биохимически. Биохимические следы эукариот (стерины, к примеру) находят в отложениях, датируемых ещё риасием. Но точно подтверждённые эукариоты появляются только в самом конце орозирия, когда кислорода в атмосфере стало достаточно для их деятельности. Наиболее распространенной версией появления эукариот стала симбиотическая, тем более, что она подтверждается последними исследованиями. А версия эта гласит, что эукариоты вышли из архей (это организмы, похожие строением на бактерий, но сильно отличающиеся от них биохимически).
Археи в плане биохимии действительно очень близки к эукариотам и далеки от бактерий. К сожалению, археи очень плохо поддаются разведению в искусственных условиях, поэтому о них известно крайне мало. Но, скорее всего, эукариоты действительно позаимствовали в начале своей эволюции крупную клетку архей, а также их плазматическую мембрану и цитоплазму, вместе со всеми биохимическими особенностями. На какой-то стадии развития крупная архейная анаэробная клетка опутала своими внешними выростами несколько кислородпотребляющих бактерий. Мембраны внешних выростов почти растворились в цитоплазме, позже будучи окружёнными новой оболочкой, превратившись во внутриклеточные эндоплазматический ретикулум и аппарат Гольджи, а окружённые ими бактерии превратились в клеточные органоиды - митохондрии и пластиды.
Окружённые, поглощённые и включённые в работу органоиды сохранили тем не менее свою "бактериальную" независимость, до сих пор имея свой собственный генетический аппарат. Свою "личную" ДНК имеют как митохондрии, производящие энергию, так и хлоропласты, включённые в клетки Хромист, Протист и Растений, как фотосинтезирующие, то есть производящие "на ровном месте" органические вещества из неорганических. Первые орозирийские эукариоты не были ни растениями, ни животными, ни грибами, а объединяли в своих одноклеточных организмов черты их всех сразу.
Статерий. "Скучный миллиард"
Статерий - последний период палеопротерозоя. Начался 1,8 миллиарда лет назад и продолжался 200 миллионов лет. Традиционно считается началом "Скучного миллиарда" - эпохи в истории планеты, когда с точки зрения учёных ничего интересного не происходило. Климат был стабильным, без потеплений и похолоданий. Стабильным было содержание углекислого газа и кислорода в атмосфере. Стабильной была геология планеты. Практически вся имеющаяся суша собралась в супер-континент Колумбия, который и не думал пока распадаться, хотя потихонечку прирастал новыми землями.
Жизнь была только и исключительно одноклеточной, казалось бы буквально застывшей со времён сидерия и риасия. Всё те же сообщества бактерий, цианобактерий и архей. Хотя нет! Ещё в предыдущем орозирийском периоде в палеонтологической летописи планеты появляются следы жизнедеятельности новых, уже весьма сложно устроенных организмов - эукариот. В статерии же эукариоты развивались и эволюционировали, хотя и не так быстро, как хотелось бы учёным. По наиболее распространённый и любимой научными кругами версии эукариоты возникли в результате симбиотического взаимодействия между археями и бактериями.
Археи предоставили бактериям "дом", то есть внутренности своей весьма просторной клетки, а также кое-какие отработанные процессы (биохимия архей близка к эукариотам) . Бактерии же в получившимся общежитии стали отвечать за питание и дыхание. Больше всего повезло тем новым организмам, которым повезло заиметь внутри себя цианобактерии. Бесперебойный источник питания в результате процесса фотосинтеза им был обеспечен. Так будущие растения приобрели свои первые пластиды. Но прочим не повезло. Пластид предкам будущих грибов и животных не досталось. Пришлось придумывать что-то новое, так как способы питания большинства прокариот для крупных эукариотических клеток не подходили. Уж слишком мало получалось энергии!
Предки грибов придумали выбрасывать в окружающую среду особые вещества, которые были способны растворять всю органику и разлагать её до мономеров. Получившуюся питательную жидкость оставалось только впитать всей поверхностью клетки. А уж затем митохондрии (первоначально - бактерии-симбионты с кислородным метаболизмом) успешно переработают её в энергию. Теперь одноклеточный прото-гриб мог уютно устроиться посреди цианобактериального мата и кушать, кушать и кушать. Над биоценозами статерия нависла нешуточная угроза.
Но это были ещё цветочки. Современные животные клетки не имеют прочной клеточной стенки и к сохранению постоянной своей формы иной раз относятся наплевательски. Думается, что и их далёкие предки тоже были лишены этой защиты, но зато они приобрели вместо неё подвижность, используя для перемещения выросты цитоплазмы - псевдоподии или ложноножки. Кроме медленного, но перемещения по твёрдой поверхности псевдоподии позволяли захватывать отдельные твёрдые частицы. Цитоплазма смыкалась вокруг этих частиц, образую вакуоль. Если в вакуоль попадалось что-то вкусное, то в неё выпускались вещества, аналогичные грибным. Вкуснятина растворялась, разлагалась до мономеров, а затем использовалась на нужды организма.
Так появились первые хищники - амёбоподобные организмы, предки современных одноклеточных протист и предшественники многоклеточных животных организмов. Первые амёбы по тем же питательным матам могли и ползать и даже отлавливать отдельные зазевавшиеся бактерии, которые были способны сбежать с помощью жгутиков. Опасность стала подстерегать везде. И все эти ужасы происходили во время статерийского периода. А вы говорите "скучный миллиард"!?
Калимий. Живые организмы начали хотеть "странного"
Калимийский период или калимий - это первый период мезопротерозоя, который начался 1,6 миллиарда лет назад и закончился 1,4 миллиарда лет назад. Мезопротерозой - это олицетворение "Скучного миллиарда". Казалось, что действительно ничего интересного в истории Земли не происходит. Но так ли уж было "неинтересно"? Было! Причём происходили эти события уже в калимии. Основные "нескучные" события происходили в географии планеты. Примерно посередине периода распадается супер-континент Колумбия. Это был огромный массив суши, протянувшийся почти на 13 тысяч километров с севера на юг и почти на 4 тысячи километров в самом широком месте с запада на восток.
Распадается Колумбия на целую кучу микро-континентов, которые хотя и расходятся в разные стороны, но при этом начинают стремительно набирать "шкуру". Всю вторую половину калимия идёт стремительное наращение площади материковой коры. Продолжается горообразование. В калимии возникают зачатки Трансантарктических гор от столкновения современной Восточной Антарктиды с каким-то неизвестным микро-континентом. Значительно позже этим же "швом" воспользовалась Западная Антарктида, которая в те далёкие времена находилась чуть ли не на противоположенном краю планеты от нынешней восточной соседки. В это же время возникают зачатки современных Хибин и невысоких гор юга Скандинавского полуострова.
Другим "нескучным" даже без кавычек событием калимия было появление на свет некоей Тавуйи. Этот живой организм стал очередным "черновиком Господа Бога". Вторым после чудовищно древних (2,3 миллиарда лет назад) габонионтов. Тавуйи были намного более вероятными, чем последние, так как подтверждённые эукариотические одноклеточные организмы уже точно существовали. Во времена габонионтов таковых ещё не было, что и порождает проблемы с этими самыми габонионтами. Калимийские Тавуйи были прикреплёнными маленькими организмами не больше 3 мм в высоту от своего уплощённого прикрепительного диска. Но они были СЛИШКОМ большими для калимийского микроскопического одноклеточного мира эукариот и прокариот.
После многочисленных исследований Тавуйи были признаны эукариотическими псевдомногоклеточными организмами. По уровню организации они не доходили даже до вымерших и современных губок, которые представляют собой конгломераты амёбоподобных клеток, которые выполняют различные функции и слабо связаны общей оболочкой. Намного больше они напоминают слизевиков. Современные представители этой группы грибовидных организмов на разных своих жизненных стадиях могут представлять собой одну огромную клетку с кучей ядер и внутренних оболочек (по типу грибницы банального подберёзовика), колонию амёбоподобных организмов, которая способна двигаться в строго определённом для всей колонии направлении или просто конгломерат клеток.
Эти "зверюги" (Тавуйи) представляли собой колонию смеси грибоподобных и животноподобных клеток. Они наверняка не были предками современных слизевиков, хотя и представляли их прикреплённое подобие. Они не были предками грибов. Они не были предками животных. Но это был мезопротерозой. Все эукариоты ещё были очень схожи друг с другом. Но они уже начали выделять из своей среды организмы, которые "хотели странного".
Эктазий. Многоклеточным быть
Эктазий - второй период мезопротерозоя, который начался 1,4 миллиарда и закончился 1,2 миллиарда лет назад. Является аж третьим подряд периодом "скучного миллиарда". Но скучно в эктазии точно не было. Продолжался распад супер-континента Колумбия. Распад распадом, но при этом общая территория материков стремительно росла, увеличившись за время периода больше чем на половину. В основном это происходило за счёт того, что древние щиты расходились, а промежуток между ними заполнялся осадочными породами. Самое интересное, что если первую половину периода материки двигались друг от друга, то во второй половине вектор движения поменялся. Материки снова начали сближаться, готовясь соединиться в следующий супер-континент.
На планете тогда было достаточно прохладно. Среднепланетная температура едва достигала 12 градусов по Цельсию (сейчас - 15), а куски Колумбии, которые при распаде супер-континента занесло в высокие широты и вовсе покрылись ледниками. Такие следы мезопротерозойских оледенений были обнаружены в Австралии, Южной Африке и Китае. Было хоть и прохладно, но душновато, так как уровень углекислоты в атмосфере ну очень сильно превышал не только современный, но и мезозойский, и палеозойский. Уровень же содержания кислорода оставлял желать лучшего. Он словно застыл на отметке 1%.
И если с климатом и составом атмосферы всё действительно было стабильно и скучно, то совсем не так было с органическим миром. Во-первых, одноклеточные эукариоты окончательно определились с планом строения и способом питания. Они окончательно разделились на три ветви. Первая укротила хлорофилл и другие светоулавливающие пигменты, став автотрофами (сами могут производить органические вещества с помощью энергии света) с прочной клеточной стенкой из целлюлозы. Вторая тоже обзавелась клеточной стенкой (правда, из хитина) в дополнение к мембране, но вот производить органические вещества не могла. Эти эукариоты были вынуждены питаться уже готовыми органическими веществами, всасывая их в виде раствора. Неудивительно, что многие из них стали паразитировать на более удачливых экологических соперниках. Ну а третья ветвь ещё в далёком орозирии освоила фагоцитоз (умение поглощать твёрдые частички пищи).
В общем, первые стали предками хромист и растений, вторые - предками грибов и многочисленных грибоподобных организмов, а третьи - предками протист и животных, включая и нас с вами. Вполне возможно, что генеральных линий эукариот было значительно больше, чем три, но за давностью веков и отсутствием потомков (невозможно хотя бы биохимические следы отследить) это установить уже невозможно. Во-вторых, именно в эктазии зафиксирован первый выход живых организмов на сушу. Это первыми сделали грибы. Биохимические следы именно грибных организмов были обнаружены в тех областях Гренландии и Австралии, которые точно никогда не были морским дном. Что, к слову, немного странно. Не то, что эти регионы морским дном не были, а то, что на сушу вышли грибы.
Просто грибам необходимы готовые органические вещества, причём растворённые в воде. На безжизненной суше давностью 1,2-1,4 миллиарды лет назад их просто некому было производить, да и с водой были проблемы. Можно только предположить, что проживали эти организмы в мелководных пресных водоёмах, а питались, чем Бог подаст, то есть оставшимися органическими веществами неорганического происхождения, сносимыми в эти водоёмы, да матами бактериальными и цианобактериальными, которые в пресной воде жили хоть и хуже, чем в морской, но жили. Ну а в-третьих, в данном периоде появились первые точно подтверждённые многоклеточные эукариотические организмы. Не колонии (как вольвокс или цепочки цианобактерий, известные нам по учебникам биологии) и не псевдомногоклеточные, как слизевики, а самые настоящие.
Пионерами стали те эукариоты, которые использовали фотосинтез для "приготовления" органических веществ и имели прочную клеточную стенку из целлюлозы. Первыми стали красные водоросли или багрянки, чьи окаменелости были найдены в эктазийских породах северной Канады (тогда приэкваториальной). Буквально пару десятков лет назад они бы назывались первыми растениями, но сейчас это первые многоклеточные хромисты, которые хотя и являются родичами растений, но вовсе не они. Мезопротерозойские багрянки несущественно отличались от современных. Разве что разнообразия поменьше было. Основной жизненной формой 1,2 миллиарда лет назад у красных водорослей была нить, толщиной в одну клетку. По факту это была цепочка клеток с очень слабой дифференциацией. Уверенно можно выделить только три типа: прикрепляющие, основные и половые.
Да-да-да, половое размножение - это тоже изобретение времён эктазийского периода. Собственно, оно и невозможно было бы без появления истинной многоклеточности. Половые клетки мало того, что сильно отличаются от других, так ещё и обладают только половинным хромосомным набором. Замечу, кстати, что даже современные багрянки не захотели за миллиард с лишним лет развития эволюционировать свои гаметы (половые клетки). Они не приобрели ни органы передвижения, ни заметные размеры, ни ещё какие-то плюсики. Они остались банальными основными клетками с половинным набором хромосом, которые с трудом и только случайно осуществляют половой процесс с помощью водотечений.
Стений. "Русский" период мезопротерозоя
Стений или стенийский период - это последний период мезопротерозоя, который начался 1,2 миллиарда лет назад, а закончился ровно 1 миллиард лет назад. Почему "Русский"? Да потому, что именно в этом периоде начал "сборку" очередной супер- континент - Родиния, который получил своё название от простого русского слова "родина". А окружал супер-континент один-единственный планетный океан - Мировия (от слова "мир"). Центром "сборки" Родинии стал североамериканский Лаврентийский супер-кратон (пра-Лаврентия).
С юго-востока к пра-Лаврентии присоединился Восточно-европейский кратон (пра-Балтика). Места соединения этих двух микро-континентов до сих пор хорошо заметны на географических картах и на местности. Это Аппалачские горы в США и Канаде и горы юга Швеции и Норвегии в Европе. Юг Родинии составили отдельные кусочки будущей Южной Америки (кратоны Амазония, Сан-Франциско и Рио-де-ла-Плата. На юго-западе присутствовали части будущей Африки (Западно-африканский кратон, кратоны Конго и Калахари). Запад Родинии - это будущая Австралия. На север от неё находились территории будущей восточной части Антарктиды. Ну а север и северо-восток супер-континента с русским названием составили пра-Азия/Ангарида, кусочки будущего Китая, южные части будущего евразийского континента и западная часть Антарктиды.
Родиния, наверное, не зря получила русское название, так как климат на ней вполне соответствовал представлений иностранцев о климате России. То есть мороз и солнце, как говорил "наше всё" (А. С. Пушкин, если что). На Родинии действительно было морозно, хотя она и располагалась преимущественно в низких широтах. Среднепланетная температура едва достигала 12 градусов по Цельсию (сейчас 15). Следы весьма масштабных материковых оледенений той поры и сейчас прослеживаются в Южной Америке, Африке и Австралии. Зато было солнечно. Появление огромного континентального массива изрядно иссушило климат и прогнало с небес облака.
Кислорода было маловато. На протяжении миллионов лет мезопротерозоя его количество не увеличивалось и составляло всего 1% в атмосфере (сейчас 20,9). Фотосинтезирующие цианобактерии конечно старались этот процент увеличить, но у них не сильно это получалось. Связано это было, в том числе, с появлением Родинии. Огромный континентальный массив сильно понизил уровень океана и уменьшил количество мелководных тёплых морей, которые и были основным местообиталищем живых организмов. Так что этим самым живым организмам приходилось весьма несладко в стенийском периоде. Места пригодного для жизни маловато, кислорода, чтобы создать что-то по хорошему сложно устроенное, маловато, суша - так вовсе почти безжизненна (только биохимические следы жизнедеятельности грибоподобных организмов были обнаружены учёными на видимых сейчас просторах Родинии.
Так что самыми сложными живыми организмами стения были красные водоросли - багрянки, которые даже сумели "изобрести" половое размножение. Правда, одно исключение (и ещё есть парочка неподтверждённых!) было найдено. Места, где сейчас располагается Тиманский кряж (возвышенность на северо-востоке Русской равнины), в конце стения были дном мелководного моря. Причём моря достаточного тёплого (эти края тогда находились практически на экваторе) и, видимо, весьма богатого растворённым в воде кислородом. Иначе бы не завелись здесь таинственные многоклеточные организмы, которые точно не являлись багрянками.
Это были представители так называемой тиманской биоты - одного из "черновиков Господа Бога", которые не оставили потомков среди ныне живущих существ. Прикреплённые бокало- и кубко-подобные организмы достигали просто невообразимых для мезопротерозоя размеров. 3-4-сантиметровые исполины просто поражали воображение. Были они, скорее всего, животными, причём животными многоклеточными, хотя и грибная природа тоже подозревается. Точно представители тиманской биоты не были растениями и им подобными организмами. Не обнаружено никаких следов того, что они фотосинтезировали, да и вид по параметрам общей площади поверхности вовсе не был свойственен растительным организмам.
Также относительно сложные многоклеточные организмы были обнаружены в слоях возрастом 1-1,2 миллиарда лет назад в северной Шотландии, которая тогда была внутрилаврентийским озером или морем, и в южной Сибири (лахандинская биота). И если в "шотландцах" можно было подозревать животных (они подозрительно были похожи на вымерших давным-давно габонионтов), то "лахандинцы" были, скорее всего, не животными, а грибами.
Тоний. "Скука" целого миллиарда лет закончилась
Тонийский период или тоний - первый период неопротерозоя. Начался 1 миллиард лет назад и закончился 720 миллионов лет назад. По продолжительности (280 миллионов лет) стал самым длинным периодом из всех ныне выделенных. "Скучный миллиард" действительно закончился. Геологическая и биологическая эволюция планеты сильно ускорилась и стремительно понесла Землю к многочисленным биологическим взрывам. Но тонийский период был только предвестием этих самых "взрывов".
В течение всего периода распадался супер-континент Родиния. Некогда единое континентальное пространство раскалывалось по многочисленным рифтам, которые возникли буквально по стыкам ранее соединившихся микро-континентов. Самое интересное, что все осколки Родинии внезапно решили двигаться в одном направлении. В итоге, в конце тония все эти осколки в виде огромного архипелага оказались в районе Южного полюса, что оказалось началом всепланетной трагедии.
Но эта трагедия произошла в следующем периоде, а пока тоний продолжал "стабильные" традиции мезопротерозоя в плане климата и условий жизни. Климат продолжал быть весьма прохладным (около 12 градусов среднепланетной температуры, которая резко начала падать к концу периода), а состав атмосферы весьма малокислородным (около 1%, что, в принципе, привычно почти для всего протерозоя). Но самые интересные события тония происходили вовсе не геологии и климатологии планеты, а в её биологии.
Тоний - это время многоклеточных животных. Животных странных, большей частью представляющих собой конгломерат (колонию) клеток, весьма слабо дифференцированных и даже не сильно-то и связанных друг с другом. Такой организм может легко распасться на два и даже на сто дочерних при неблагоприятных (а то и наоборот - при благоприятных) условиях, и даже восстановить свою целостность из одной-единственной клетки. Подобными организмами (вернее, практически идентичными) являются современные губки - дотканевые животные, представляющие по сути колонии тесно связанных между собой амёб.
В принципе, губки - это вполне естественный вариант перехода от одноклеточных животных клеток (которых было полно в предыдущих периодах) до по-настоящему многоклеточных организмов. И это полностью принято самыми разными группами учёных. Другое дело, что в тонийском периоде губки жили разные. Почему так предположили? Молекулярные и генетические исследования всех ныне живущих многоклеточных животных, организацией этих губок превосходящих, относят к потомкам этих самых тонийских губок, вроде Отавии. Всех...
Всех, кроме современных гребневиков. Это многоклеточные кишечнополостные, но не стрекающие животные, которые не имеют отношения ко всем известным ныне и вымершим ранее губкам, то есть точно не являющиеся их потомками. Их предками являлись какие-то "другие" губки, которые пока не обнаруживаются в палеонтологической летописи. То есть в тонии существовали губки "наши" (от которых произошли все ныне существующие типы животных, кроме гребневиков); губки "не наши" (от которых произошли гребневики) и "совсем другие" губки, которые существовали, но не оставили потомков.
Но кроме губок, которые, собственно, появились только ближе к концу периода (и "наши", и "не наши", и "другие"), в тонии существовали и другие удивительные многоклеточные животные. В принципе, они могли быть ещё и не животными, а, скорее, живописной смесью животных, грибных и грибоподобных клеток. Это представители таинственных тиманской (самое начало тония около 1 миллиарда лет назад) и хуайнаньской (840 - 740 миллионов лет назад) биот. Данные "товарищи" морфологически не имели ничего общего ни с губками, ни с представителями значительно более поздних эдиакарских биот.
Животные тония были нечасто встречающимися, так как проживали в нечасто же встречающихся в тонийском периоде тепловодных и мелководных морях. Животные тония были весьма интересными. Животные тония были одним из "черновиков Господа Бога". Это были практически уничтоженные в последующем периоде биоты, которые оставили потомков всего в двух линиях (одна из которых так и не смогла проэволюционировать во что-то большее, чем кишечнополостные). Остальные линии то ли были уничтожены всепланетным ледниковым периодом, то ли не выдержали конкуренции, а, скорее всего, и то, и другое. В любом случае, до нынешних дней дожили потомки только двух линий тонийских губок, одна из которых оказалась "неполноценной".
Криогений. Когда всё замёрзло
Криогений - второй период неопротерозоя, который начался 717-720 миллионов лет назад и закончился 635 миллионов лет назад. А мог и вовсе не закончится никогда... Почему? Сейчас объясню. "Крио" по-гречески "холод". И действительно очень холодно было в криогеновом периоде! Если сейчас среднепланетная температура составляет почти 15 градусов по Цельсию, то почти три четверти миллиарда лет назад она опускалась в минусовой диапазон, достигая - 20 градусов. Планета стремительно замерзала, очень напоминая собой Марс 2-хмиллиарднолетней давности, ещё до того, как его замёрзшие океаны испарились путём возгонки.
Мировой океан промёрз практически до глубоководных желобов. Материки представляли собой унылые вымороженные пустоши. Снега на них не было, так как влага в атмосфере, способная вызвать снегопады, практически отсутствовала. Поэтому планету криогенового периода нельзя было в полной мере назвать "Землёй-снежком", как любят её сейчас называть. Что вызвало такой глобальный и длительный ледниковый период? Причин масса. Основными называют геологические. Здесь две версии. По первой куски распадающейся Родинии собрались кольцом вокруг экватора, препятствуя водо- и теплообмену между полушариями. По второй (более, на мой взгляд, реальной) эти самые куски в процессе распада уж очень опасно отдрейфовали в район Южного полюса.
В итоге получилось что-то подобное неогеновой Антарктиде, но в гораздо большем масштабе. Колоссальные куски суши, сосредоточенные на крайнем юге, очень быстро окружило круговое холодное течение, отрезавшее образовавшуюся Паннотию от тёплых экваториальных вод. Сейчас даже одна Антарктида (10% суши планеты) резко снижает среднепланетную температуру. Если бы её не было, то на планете было бы на 4-6 градусов теплее. В криогении же в роли Антарктиды могли быть почти все материки Земли. А далее запустилась цепная реакция. Температура падала и падала, в мелководных морях, поглощая их, росли и росли ледники, постепенно забираясь в их глубины. А потом замерзанию подверглось и существенная часть океанского ложа (а океан тогда был один - Мировия, остальные только зарождались).
Не стоит, конечно, представлять, что весь период был исключительно холодным, океан был скован льдами, а вся суша представляла собой бесснежные замороженные пустоши. Оледенения накатывались волнами, а между этих волн были достаточно продолжительные тёплые периоды. В принципе, логично. Материки продолжали толкаться, собираясь собирать супер-континент Паннотию. Эта суета вызывала повышенную вулканическую активность. Вулканы и топили ледники, подогревая их, уменьшая их отражательную способность, выбрасывая в атмосферу тонны и тонны парниковых газов. Тем не менее трижды планета имела все шансы превратиться в огромный снежок, несущийся сквозь космический холод, да так и не выйти из этого состояния.
717 миллионов лет назад началось рэпитенское оледенения, следы которого обнаружены в Северной Америке, на Аравийском полуострове, в Южном Китае. Продлилась эта холодная эпоха 8-10 миллионов лет и сменилась затем относительным теплом. Скорее всего, во времена рэпитена ледники не осмеливались уходить далее шельфа, да и растаяли они достаточно быстро. Относительно тёплой паузой немедленно воспользовались живые организмы. Около 700 миллионов лет назад появляются самые эффективные на тот момент фотосинтетики - зелёные водоросли. Возможно, именно они, выкачав из атмосферы необходимый им углекислый газ, спровоцировали вторую волну оледенения - стертскую (670-660 миллионов лет назад).
После её окончания снова наступили относительно тёплые времена, но ледники никуда не делись, вовсе не собираясь окончательно таять. Это короткое межледниковье (660-650 миллионов лет назад) стало решающим для животных. Метод молекулярных часов, основанный на скорости накопления мутаций, как раз на этот промежуток указывает как наиболее вероятное время возникновения практически всех современных типов животных (кроме губок, стрекающих и гребневиков). В это же время на суше появляются следы работы первых лишайников - грибов, которые в виде фотобионтов приручили цианобактерий. Их можно было понять. Суша, дажа голая и промёрзшая была более уютным местом, чем промерзающие до дна мелководные моря. На суше, по-крайней мере, света хватало вдоволь.
А 650 миллионов лет назад началась самая мощная волна - мариноанское оледенение. Вот из него Земля имела все шансы не выйти совсем. Тектоника плит подуспокоилась, вулканизм пошёл на спад, количество парниковых газов в атмосфере катастрофически снизилось. Воды планеты оказались скованы льдом. Лишь узкая полоска открытой (но очень-очень солёной!) воды осталась у экватора. Почти 15 миллионов лет ничего хорошего на планете не происходило. Но на границе криогенового и эдиакарского периодов материки одумались и отправились на север. Проснувшийся вулканизм запустил процесс оттаивания. Больше глобальных оледенений в истории планеты не было, хотя девонское оледенение и заставило поволноваться.
Мучения жизни в криогении
Тяжёлые времена настали для земной биосферы с наступлением криогения - периода неопротерозойской эры, который начался 720 миллионов лет назад. Стало холодно... Даже не так! Стало очень холодно! Среднепланетная температура опускалась до -20 по Цельсию (сейчас +15). То есть и на экваторе температура вполне могла опускаться ниже нуля, а на полюсах свирепствовали даже не сибирские или там антарктические, а прямо-таки марсианские морозы. Суша превратилась в вымороженные каменистые пустоши, а колыбель жизни и главное место обиталища живых организмов - мелководные тёплые моря, промёрзли до дна.
Живым организмам пришлось туговато. Большинство из них сильно приуныли и решили банально вымереть. И вымерли на большей части планеты. Жизнь буквально едва теплилась в районах подводных вулканов (где было потеплее) и в узких полосках открытой воды в районе экватора (где было посветлее). Посветлее было и на суше, так как там ледники не образовывались. Им образовываться было не из чего. Основой формирования материковых ледников является снег, который не успевает растаять. А снега не было. Не было потому, что в атмосфере практически отсутствовала влага, которая аккумулировалась в ледниках шельфовых. Так что почти весь криогений над планетой было безоблачное небо и яркое солнце (правда, не слишком жаркое).
На сушу заглядывались... Ещё бы, свет - это возможность фотосинтезировать, а значит жить! Только две проблемки было: отсутствие жидкой воды на суше и отсутствие у живых организмов защиты от жёсткого излучения родной звезды (озона в атмосферу пока не завезли) и жутких морозов. Но, тем не менее, герои нашлись. Ими стали грибы. Своими тонкими и прочными гифами грибы способны зацепиться за любой субстрат и извлечь воду даже из вечной мерзлоты. Кроме того, прочная хитиновая оболочка грибных клеток обеспечивает им вполне достойную защиту от внешних воздействий. Только и у грибов проблема была: кушать им на суше было нечего, фотосинтезировать они не умели. Тогда они поступили хитро. Грибы или договорились, или захватили в плен цианобактерии. Получился симбиоз: одни добывают воду и обеспечивают защиту, вторые получают необходимые органические с помощью энергии солнечного света. Так на промороженную криогеновую сушу вышли первые лишайники!
Но и воде жизнь вовсю цеплялась за жизнь! И выдавала при этом весьма интересные решения! Живые организмы вовсю приспосабливались к условиям глобального ледникового периода. Это же один из законов эволюции - чем хуже, тем активнее идут эволюционные процессы. Ведь выживает самый приспособленный! Вот и приспосабливались живые, как могли, цепляясь за малейшие возможности. Во времена короткого потепления между рэпитенским и стертским оледенениями на свет появляются самые эффективные фотосинтетики криптозоя (эпохи скрытой жизни) - пока ещё одноклеточные зелёные водоросли. Вполне возможно, кстати, что именно они и спровоцировали стертское оледенение, очень эффективно лишив атмосферу накопившегося в ней парникового углекислого газа.
Среди протист (одноклеточных обладателей клеток "животного" типа) появляются инфузории - вершина развития представителей этого одноклеточного царства. Активно эволюционируют амёбы, развивая достаточно быстрые хищные формы. Некоторые из них решаются на восхождение на следующую ступень эволюционной лестницы, образуя колонии. Эти колонии обзаводятся общим минеральным скелетом, затем дифференцируют клетки (какие-то занимаются добычей пропитания, другие переработкой результатов работы первых, третьи защищают общее жилище, четвёртые обеспечивают размножение). И вот вам результат: миру явлено первое многоклеточное, пока ещё дотканевое животное - губка.
В принципе, губкоподобные организмы известны ещё из предыдущего периода - тонийского (знаменитая отавия), но именно из криогеновых отложений извлекли окаменелости, точно отождествлённые с губками по типу современных. Самое интересное, что практически все известные сейчас типы многоклеточных животных ведут свой род из криогения. По-крайней мере, так говорит метод молекулярных часов (который рассчитывает время расхождения различных групп организмов по скорости накопления мутаций). Нас, конечно, больше всего интересуют билатеральные животные (этакий билатеральный шовинизм!), которые появились на свет именно тогда, в небольшой промежуток между стертским и мариноанским оледенениями.
А это, во-первых, уже настоящие многоклеточные животные, а не "муравейники амёб" по типу губок. Во-вторых, это достаточно сложно организованные животные, имеющие не только ткани, но и органы и их системы. Правда, возникнуть-то они возникли (хотя палеонтологических доказательств тому нет), но время их ещё не пришло. Следующий после криогения период - эдиакарий, стал временем странных существ, которые к билатералиям не имели никакого отношения. Но их время ещё придёт! И за долгие миллионы лет развития приведёт к тому существу, что сейчас пишет эту книгу, набирая текст на ноутбуке.
Как жилось в эдиакарии
Эдиакарский период или эдиакарий (635 - 539 миллионов лет назад) - последний период неопротерозойской эры, последний период протерозойского эона и последний период криптозоя (эпохи "скрытой жизни"). С двух сторон ограничен знаменательными событиями в жизни планеты. Стартовал эдиакарий тогда, когда закончилось глобальное мариноанское оледенение, а закончился перед кембрийским взрывом - почти одномоментным появлением представителей практически всех ныне живущих типов животных. В принципе, в эдиакарском периоде был свой взрыв - авалонский, но о нём попозже.
Эдиакарий - это самый молодой из периодов геохронологической шкалы. Свой официальный статус он получил только в 2004 году. До этого использовался термин "вендский период". Начинался венд попозже (600 миллионов лет назад), да и заканчивался тоже позже (535 миллионов лет назад). Его начало совпадало с началом существования супер-континента Паннотия, а конец датировался временем появления останков кембрийских организмов в осадочных отложениях древней Балтики (одного из континентов, на которые Паннотия распалась). В настоящее время вендский период является не международным, а региональным и используется только у нас в стране и в Белоруссии с Казахстаном. Причём используется только для описания "местных" докембрийских слоёв (тогдашние материки Балтика и Ангарида).
Начало периода можно описать словами "холодно" и "неуютно". Среднепланетная температура едва достигает 8 градусов. Но и это замечательно! Ведь ещё совсем недавно она и вовсе была -20! Кислорода в атмосфере маловато - около 7% (треть от современного уровня). Углекислоты побольше - почти 10%. Ситуация меняется к середине периода. Температура подрастает на современных значений (около 15 градусов), увеличивается содержание кислорода. Живые организмы быстро реагируют на улучшение условий бытия взрывообразным увеличением разнообразия жизненных форм. Произошёл так называемый "авалонский взрыв". Назван так честь канадского острова Авалон, в докембрийских породах которого были обнаружены самые ранние (около 580 миллионов лет назад) представители вендобионтов - удивительных, не похожих практически ни на кого, но весьма разнообразных живых организмов.
Вендобионты вовсе не были региональным явлением вроде представителей франсвилльской или тиманской биот. Отпечатки их мягких бесскелетных тушек обнаружены на всех континентах, кроме Антарктиды. Особенно богаты находками отложения возрастом в 555 миллионов лет в мексиканском штате Сонора, Эдиакарские холмы (давшие название периоду) в Южной Австралии и наша Архангельская область. Но уж разрешите подробный рассказ об этих удивительных организмах отложить до следующей статьи цикла (через недельку примерно!). А пока продолжить рассказывать про условия, в которых были вынуждены жить представители эдиакарской флоры и фауны.
Вся история планеты доказывает, что оледенения - это не так уж и плохо. Вернее, плохо для отдельных организмов и даже целых биот, но даже хорошо для жизни в широком смысле слова. Когда жизнь попадает в стрессовые условия, значительно ускоряются эволюционные процессы. Интересно, что в первой половине эдиакария живые организмы были на уровне предыдущего периода - криогения, но стоило на фоне общего потепления случится непродолжительному и не особо сильному гаскирскому оледенению, как жизнь сразу отреагировала появлением вендобионтов. А случившееся ближе к концу периода оледенение байконурское не только почти их уничтожило, но и создало большие предпосылки для следующего эволюционного взрыва - кембрийского.
В самом конце периода на планете было тепло (почти 17 градусов среднепланетной температуры), можно было раздышаться (кислорода было почти половина от современной нормы). Мелководные прогретые моря у побережий Лаврентии, Балтики и Ангариды приготовились к кембрийскому взрыву.
Кому жилось в эдиакарии
А жилось там так называемым вендобионтам. Кто это такие? Вендобионты или же, иначе, представители эдиакарской фауны - существа до сих пор неясной систематической принадлежности. Неясно даже, можно ли употреблять по отношению к ним "слово "фауна". Уж слишком много было у вендобионтов странностей, нетипичных для порядочных представителей животного царства. Хотя часть из них несомненно была животными, причём животными многоклеточными. К сожалению, они не имели минерализованного скелета (ни внешнего, ни внутреннего), так что изучать их можно только по отпечаткам, да косвенным (иногда прямым) следам жизнедеятельности.
Часть из них напоминала стёганые одеяла, состоящие из фрондлетов - сегментоподобных единиц, которые (в отличии от настоящих сегментов) располагались ассиметрично вдоль любой оси тела. А тела эти были весьма немаленькими, достигая 4,5 метров в длину и 2 метров в ширину (Дикинсония Королевская). Правда, толщина у них была буквально ничтожная. Такое "одеяльце" опускалось на бактериальный мат и... Во-первых, достоверно неизвестно, могло ли такое "одеяльце" вообще передвигаться, хотя по некоторым цепочкам отпечатков можно предположить, что даже прыгать могло. Во-вторых, неизвестно, что же оно с бактериями делало. То ли растворяло, а потом всасывало всей своей немалой поверхностью (тогда это грибоподобный организм, а не животное), то ли питание по "животному" типу осуществляли отдельные клетки нижней поверхности тела.
Никак признаков пищеварительной системы (даже такой примитивной, как у стрекающих и гребневиков) у дикинсоний обнаружено не было. Вот только из-за какой-никакой симметрии тела в наших стёганых одеялах сначала признавали предков билатералий, то есть двусторонне-симметричных животных (к ним относится подавляющее большинство современных видов, в том числе и мы с вами). Потом присмотрелись и обнаружили, что симметрия неправильная, похожая на ту, что проявляют зубчики на молнии джинсов. Что позволительно молнии на человеческой одежде, то не позволительно нормальным живым существам. Такой симметрии ныне нет ни у кого на планете и только ланцетники позволяют себе что-то похожее.
К слову, значительно более мелкие родственники (возможно!) дикинсоний (вендия, сприггина, онегия), обладая той же скользящей симметрией, куда больше внешне похожи на членистоногих или кольчатых червей. У них даже обнаружено некое подобие пищеварительной системы, причём у некоторых внутренние трубочки идут снизу вверх (или сверху вниз?), а у некоторых по центральной оси тела, как у всех порядочных билатералий. Сейчас все эти одеяла, одеяльца и одеялышки (часть из них истончилась до червеообразного состояния) относят к группе проартикулят. Принято решение считать их своеобразным типом (можно повысить в звании до подцарства) животных. Но не отрицается полностью и их грибная природа, и даже принадлежность к ныне исчезнувшему царству живых организмов. Ещё одна интересная версия о природе большинства проартикулят, что они являются оригинальными симбионтами, приручившими цианобактерии (где помельче было) или хемобактерии (где поглубже), полностью, таким образом, обеспечивая себя питательными веществами. Представляете - единственные в мире животные с автотрофным типом питания!
Подобной же скользящей симметрией обладали рангеоморфы. Напоминали они перистые листья, перо птицы или ветви дерева, воткнутые в грунт или сидевшие на нём с помощью прикрепительной пластинки. Сначала отпечатки рангеоморфоф приняли за растения, но, во-первых, найдены они были в слоях, которые соответствовали глубинам почти в километр, где фотосинтез невозможен, а, во-вторых, в отпечатках обнаружены следы стеринов, типичных для животных. То есть рангеоморфы это всё-таки животные, напоминающие примитивные морские лилии. Кстати, интересный вопрос: а чем же они питались? Ведь практически все их отпечатки найдены на серьезных глубинах свыше 100 метров, куда протерозойская жизнь соваться не любила. Фотосинтез невозможен. Бактерий проплывающих не поймаешь (нечего им так глубоко делать). "Морского снега" (детрита, падающего на морское дно сверху) ещё не было, так как не существовало планктонных организмов. Предположить можно только два выхода. Первый: рангеоморфы были симбиотическими организмами, которые предпочитали "дружить", к примеру, с хемобактериями. Второй - это предположение, что материковый склон и ложе океанов в протерозое ещё было богато растворёнными органическими веществами. И вот их-то и поглощали наши "перышки" всей поверхностью своего организма (какое-то "грибное" питание получилось!). Самым известным представителем рангеоморфов является знаменитая чарния.
Кроме "одеял" и "перьев" в эдиакарском периоде жили и процветали "мешки". Напоминали они внешне нынешних оболочников (которые вообще-то почти хордовые), но не окружали своё мягкое тельце туникой из целлюлозы (уникальное, кстати, явление в животном мире!). В ископаемых слоях обнаруживаются в виде мешочков, наполненных своего рода грязью. Из чего, к слову, можно сделать косвенный вывод, что никакого сложного внутреннего строения у них не было. Но тем не менее, именно они стали первыми достаточно эффективными донными фильтраторами. Самым хорошо изученным среди "мешков" организмом стала инария, которая внешне напоминала банальную головку чеснока. Правда, достаточно большую: что диаметр основания, что высота составляла более 12 см. Не исключено, что мешкообразные организмы имели отношение к эволюции хордовых.
Ещё одной разновидностью вендобионтов были организмы с удивительными вариантами симметрии: радиально-спиральной (цикломедуза, которая к медузам отношения не имеет) и трёхлопастной (трёхлучевой её назвать трудно, так тоже спиралька может закрутиться) - трибрахидиум, альбумарес. Последние вполне возможно имели некое отношение к эволюции иглокожих. Собственно, не надо скидывать со счетов ту вероятность, что практически все представители вендобионтов имели отношение к современным животным. Во-первых, метод молекулярных часов (по скорости накопления мутаций, которая позволяет определить родство и время эволюционного расхождения современных видов) указывает на времена конца криогения и эдиакарий, как на время возникновения почти всех современных типов животных.
А ещё есть интересная версия, что в конце Беломорской радиации (всплеска разнообразия эдиакарских организмов около 560-550 миллионов лет назад) часть вендобионтов решила эволюционировать путём уменьшения числа сегментов своего тела. В результате оставались только сегмент "головной" и центральная ось тела, что делало уже невозможной скользящую симметрию. Потом кто-то решил количество сегментов снова увеличить (предки кольчецов, членистоногих), но скользящая симметрия уже не вернулась. Эти сегменты стали параллельно-симметричными. Кто-то же решил пойти по пути радикального сокращения этих самых сегментов. Такой путь выбрали, скажем, предки моллюсков.
Закончу тем, что в эдиакарии вполне встречались живые организмы, которые (с известными условностями) можно считать представителями современных типов. Кимберелла уже оперировала примитивной радулой, буквально соскрёбывая с субстрата цианобактериальные маты (чему остались следы в окаменевшей истории). То есть это вполне себе моллюск, только примитивный. Клаудине и вовсе первой из эдиакарских животных повезло заиметь кальцинированный внешний панцирь. Скорее всего, эта "зверушка" могла стать предком или близким родичем многощетинковых червей. Намакаталус предположительно обладал уже достаточно хорошими органами зрения и вполне мог быть в основе широко разветвлённого эволюционного древа лофотрохозой (клады, объединяющей мшанок, плоских и кольчатых червей, брахиопод и моллюсков).
Вендобионты появляются во времена Авалонского взрыва около 580-590 миллионов лет назад, проходят стадию расцвета во времена Беломорской радиации, затем следует упадок времён Нанской фауны и полное вымирание на границе эдиакария и кембрия (лишь отдельные отпечатки вендобионтов фиксируются в слоях кембрийского периода). Мирные жители эдиакария не сумели встроиться в гонку "щита" и "меча" после кембрийского взрыва.
Кембрийский вестник
Представьте, что вы читаете газету, которая рассказывает о событиях которые начали происходить 542 млн. лет назад (по другим данным - 541-538 млн. лет назад). Подобная газета, к слову, могла бы выходить (а то и выходит!) в британском городе Кардифф, неподалёку от которого и были впервые найдены богатейшие в биологическом плане геологические отложения того времени. Начало кембрийского периода (он получил наименование от римского названия британской области Уэльс) очень чётко разделяет окончившуюся неопротерозойскую эру от начавшейся палеозойской. "Мёртвые" отложения (без фоссилизированных останков и с крайним минимумом отпечатков живых существ) вдруг сменились огромным богатством ископаемых останков морских обитателей, представляющих (пусть на примитивном уровне) уже все типы современных животных (современный Уэльс представлял тогда дно мелкого тёплого моря).
А ведь буквально за несколько миллионов лет до начала кембрия эти самые моря внезапно оказались практически безжизненными. Достаточно богатая эдиакарская фауна (пусть и обнаруженная пока не везде) сначала сменилась намного более бедными, но с большим количеством активно двигающихся организмов, беломорской и намской. Все последние три великолепно прослеживаются на современном побережье Белого моря. А потом внезапно наступила "биологическая пустота". Что же происходило в это время на планете? В конце эдиакария по какой-то причине резко уменьшилось содержание кислорода в атмосфере и гидросфере Земли. Возможно, это и привело к массовому вымиранию вендобионтов. В кембрии же содержание кислорода постоянно росло, а в его конце достигло современных 21%. Углекислоты, правда, было ещё многовато для человека и почти всех современных животных (7-9%). Так что без кислородной маски (а то и скафандра) мы бы не смогли встретить рассвет на побережье кемрийских морей.
Температура сильно повысилась. Среднепланетная составляла 25 градусов, что на целый десяток превышала как современную температуру, так и температуру в предшествующий эдиакарский период. Сложившиеся климатические условия опять насытили моря кислородом, что существенно повлияло на эволюцию живых организмов. Суша, правда, оставалась безжизненней безжизненного. Продолжили "плавать" по поверхности планеты материки. В кембрии распалась Паннотия. В южном полушарии остался основной "осколок" Паннотии - Гондвана. Вокруг экватора "плавали" Лаврентия, Балтика и Сибирь. Между ними расположились несколько микро-континентов. "Северные" континенты окружали мелководные хорошо прогретые моря, которые и стали основой для кембрийского "взрыва".
Что взорвалось в кембрийском периоде
Понятие "кембрийский взрыв" чаще всего обозначает резкое увеличение количества ископаемых находок в кембрийских слоях, если сравнивать со слоями предыдущими. Проще говоря, вот только что ничего не было, как вдруг появилось всё сразу. Если в эдиакарии всё было неясно и непонятно, то уже в раннем кембрии были обнаружены фоссилизированные останки и отпечатки организмов, которые можно спокойно идентифицировать со всеми ныне существующими типами животных. Тем не менее, молекулярные и генетические исследования показывают, что представители современных типов или их прямые предки возникли вовсе не в кембрии, а задолго до его начала. Просто в кембрийском периоде они стали весьма заметны для исследователей будущего, так как сумели создать минерализированный внешний или внутренний скелет. Собственно, о причинах возникновения этих скелетов мы сегодня и поговорим.
Традиционной версией многие годы являлась та, что возникновение минерализованных скелетов, панцирей и раковин связано со значительным увеличением количества кислорода в атмосфере и гидросферы планеты. Дескать, появился избыток кислорода, который уже не связывался в виде различных соединений на морском дне, а значит животные (и часть растений) уже смогли позволить себе роскошь связывать его в виде соединений на своём (или в своём) теле. В принципе, логично. Действительно, количество свободного кислорода постоянно росло на протяжении кембрийского периода и в его конце достигло современных значений в 21%. Его действительно стало достаточно для того, чтобы живые организмы могли его использовать для создания известковых, кальцинированных и прочих скелетов и панцирей.
Вопрос в том, для чего они им понадобились... Ведь без особой надобности природа и эволюция не создают ничего лишнего... Думается, ответ на этот вопрос весьма прост. В кембрии возник новый тип экологических взаимоотношений живых организмов - хищничество. Возникновение первых "настоящих" хищников, а не существ, различными способами поглощающих одноклеточные организмы, заставило многоклеточных изобретать способы защиты. Такими способами стали минерализованные части организмов, о которые первые хищники вполне могли сломать свои ещё несовершенные зубы (у динокарид, кстати, было что-то типа зубов, а не преобразованные конечности, как у других членистоногих) и прочие хелицеры. Твёрдый орешек всё-таки является твёрдым орешком. Именно с кембрия началась борьба "меча" и "щита", а учёные получили великолепные экземпляры окаменелостей для изучения. Вот такой получился "взрыв" отношений "хищник - жертва"!
Кембрий - время господства членистоногих
Кембрийский период остался в истории планеты достаточно кратким временем абсолютного лидирования представителей типа членистоногих. Только в кембрии членистоногие смогли выдвинуть из своих рядов не только самых эволюционно продвинутых существ со сложными органами чувств, сложными конечностями и прочими "сложными" деталями внутреннего и внешнего устройства, но и первого "абсолютного" хищника. Мало кто на просторах кембрийских морей мог противостоять динокаридам ("ужасным креветкам"). Эти свободноплавающие, крупные (по некоторым данным, до метра, а то и более), обладающие хватательным и (частично) дробящим челюстным аппаратом, очень дальние родственники современной закуски к пиву, были апекс-хищниками всех кембрийских биоценозов. К слову, тех самых биоценозов было тогда ещё весьма немного.
Даже бронированные троюродные родственники динокарид - трилобиты - мало что могли противопоставить атаке сверху. Моллюски, иглокожие и хордовые на фоне защищённых хитиновыми панцирями членистоногих (и хищников, и их жертв) выглядели откровенно бледно. Мелкие, малоподвижные и слабозащищённые они могли спокойно стать жертвой не только какого-нибудь аномалокариса, но и вполне фитотрофного, но проголодавшегося трилобита. Ситуация изменилась уже в самом начале следующего (ордовикского) периода, в котором появились достаточно высокоразвитые головоногие моллюски и первые "настоящие" рыбы (предки современных миног и миксин начали плавать ещё в конце кембрия). Эти возникшие конкуренты начали ощутимо давить на членистоногих, стараясь сместить их с эволюционных вершин. В принципе, головоногим и хордовым это удалось. Хотя членистоногие сопротивлялись, сначала "породив" монструозных ракоскорпионов, а потом банально сбежав на пустующую ещё сушу. Но кембрий навсегда остался в прошлом временем их недолгого господства над биоценозами планеты.
"Флора" кембрийского периода
Почему я слово "флора" взял в кавычки? Флора, в типичном понимании этого слова, это растительный мир планеты. То есть организмы, которые относятся к Царству Растения. Вот только по современным представлениям к этому Царству относятся только и исключительно многоклеточные организмы, да ещё и обладающие "нужным" типом фотосинтеза и "нужным" строением. В общем, почти все водоросли, ранее считавшиеся "низшими" растениями, банально из этого Царства выпали. Не подпадают они под часть определений, да и родственными связями между собой и "высшими" растениями почти не обладают. В растительном Царстве остались только харовые водоросли и (частично) водоросли зелёные. Все остальные подобные организмы (даже многоклеточные) в число "настоящих" растений, пусть даже и "низших", не попадают. Они отнесены ныне к Царству Хромисты.
Нет, если "флорой" называть все фотосинтезирующие организмы, то с "флорой" в кембрии было всё более или менее нормально. В тёплых мелководных кембрийских морях процветали (правда, без цветения) многочисленные разновидности одноклеточных и многоклеточных водорослей: бурых, красных, золотистых и одноклеточных зелёных. В общем, в широком смысле "флора" в кембрии была. Что-то там росло, обладало целлюлозной клеточной стенкой и даже худо-бедно фотосинтезировало (правда, хуже цианобактерий). А вот в узком смысле "флоры" ещё почти не было. "Зелёные" водоросли (кроме одноклеточных форм) ещё только начали развиваться, а до появления водорослей харовых оставались ещё миллионы лет. Кроме того, и распространённость пока ещё условно растительных организмов была невелика. Так что кембрий оказался "животным" периодом. Представители животного царства на порядок по биомассе превосходили представителей растительного. Растения в кембрии банально не успевали стать основой пищевых цепей (их основой тогда были бактерии и цианобактерии).
Фауна кембрийского периода
Достаточно долгое время до и после кембрийского "взрыва" фауна планеты была только и исключительно морской. Оно и понятно: в пресных водах и на суше тогда было банально нечего кушать. Вкусные и питательные продуценты ещё не начали покорять эти пространства, так что "фауне" там было делать банально нечего. Собственно, продуцентов и в морях-то было немного. Ещё не придумали "пастбищные" пищевые цепи, так как никто ещё не мог подступиться правильно к многоклеточным водорослям. Ещё не начал плавать в толще воды фитопланктон, являющийся сейчас основой пищевой пирамиды водных биоценозов.
Так что фауне кембрийских морей приходилось довольствоваться полуголодным зоопланктоном (на бактериях сильно не разъешься), да детритом. А уж появившиеся консументы 2-го порядка отлавливали всех, кого могли. Тем не менее, в кембрийских морях немало кого плавало, ползало и вкапывалось в грунт. Немного возражений самому себе... Плавало, то есть активно двигалось в толще воды, весьма немного организмов. На первом месте среди них, конечно, находились "ужасные креветки" - динокариды - апекс-хищники кембрия. На самом деле, они не только не были креветками, то есть ракообразными, но и их членистоногое происхождение подвергается сомнению, так как не только членистые, но и любые другие ноги у динокарид отсутствовали. Что, собственно, не мешало им быть отменными (по меркам кембрия) пловцами с отменным аппетитом.
Толщу воды осваивали и наши предки - представители типа хордовых. Пикайя и хайкоуихтис тоже плавали неплохо, а конодонты и появившиеся к концу периода предки современных миног и миксин вообще по кембрийским меркам были супер-пловцами. Но гораздо больше организмов плавать не умело (или умело очень плохо) и не любило, а потому осваивали они дно, а не толщу воды. Самыми известными и самыми интересными из них были, конечно же, трилобиты. Трилобиты - явные членистоногие, но не относящиеся к современным классам этого типа. Это не ракообразные, не хелицеровые и уж тем более не появившиеся позднее насекомые. Если только современные мечехвосты (которых и осталось-то только 5 видов) могут претендовать на какую-то степень родства с этими самыми распространёнными (если судить по окаменелостям) животными кембрийского периода.
В принципе, на морском дне тогда ползало и росло (многие животные в кембрии вели вполне себе такой "растительный" образ жизни) немало интересного. К примеру, уже с начала периода известны брахиоподы (очень похожие на двустворок, но не являющиеся моллюсками). В середине периода ползать начали уже и моллюски. Они же совместно с различными червями бурили многочисленные отверстия в морском грунте. Собственно, моллюски готовились отобрать у членистоногих первенство. И это им частично удалось в следующем геологическом периоде. Но это уже совсем другая история.
Земля в ордовикском периоде
Странна и непохожа на современную была наша планета 485 миллионов лет назад. Нынешние североамериканские Аппалачи, тогда ещё очень молодые и дерзкие, возносили к небу свои вершины совсем недалеко от экватора. Приэкваториальными были и суровая ныне Сибирь и окрестности Пскова (тогда входившие в материк Балтия). Зато Южный географический полюс (и полюс холода заодно!) прятался в те далёкие времена где-то в сердце современной Африки. Если мы посмотрим на современные географические карты, то отметим, что материковые массивы сосредоточены в основном в Северном полушарии. А вот в ордовикском периоде всё было совсем не так. Почти всё Северное полушарие занимал огромный, но мелководный океан Панталасса. Сравнительно небольшие материки Лаврентия, Балтика и Сибирь жались к экватору, а Южное полушарие занимала огромная Гондвана, окружающая Южный полюс и выпускающая свои отростки вплоть до экватора. К слову, такое расположение материков весьма аукнулось органическому миру к концу периода.
Кислорода в атмосфере хватало. Не современные 20,9%, но очень близко к этому. Только не думайте, что мы могли бы погулять в окрестностях ордовикского Пскова без скафандра или хотя бы кислородной маски! Просто уровень содержания углекислого газа тогда превышал современный примерно в 200 раз, что явно превышает возможности человеческого организма. И температура среднепланетная, кстати, была вполне комфортной. Поначалу даже теплее, чем сейчас. 18-20 градусов по Цельсию (сейчас 15) среднепланетной температуры позволяли весьма комфортно существовать даже в приполярных зонах. Вот только из-за расположения материков (основная материковая масса вокруг Южного полюса) и предполагаемого характера морских течений из-за такой конфигурации температура планетная падала весь ордовикский период.
Причём падала так успешно, что его концовка оказалась омрачена весьма крупным оледенением, затронувшим, впрочем, только территории приполярной Гондваны (современные Африка, Южная Америка, Австралия, Антарктида, Индостан, Мадагаскар). Оледенения избежали только те территории Гондваны, которые располагались ближе к экватору, а также те её куски, что вовремя "сбежали" к "северным" материкам (Англия (южная часть основного британского острова), к слову, это сбежавшая и потерявшаяся часть Гондваны, которая не имеет никакого геологического отношения к "северянам"). Живые же организмы в ордовикский период просто процветали на дне и в толще вод мелководных морей. Ведь кроме почти всем известного "кембрийского взрыва" у них произошла ещё и малоизвестная "ордовикская радиация" (то есть резкое увеличение видового и родового разнообразия ранее существующих организмов). А ещё живые организмы в ордовике совершили настоящий подвиг - они начали покорять до этого совсем необитаемую сушу.
Но это уже совсем другая история... Да и закончился для живых организмов ордовик уж очень нехорошо. В конце периода случилось первое в фанерозойской цепочке массовое вымирание. В небытие отправилось 85% всех существующих видов. Вот такие дела!
Покорение суши в ордовике
Собственно, суша начала "покоряться" ещё задолго до ордовикского периода. В наземных отложениях возрастом более 1 миллиарда лет уже обнаруживаются остатки цианобактерий. Причём обнаруживаются аж целыми колониями, что-то типа сухопутных строматолитов. Эти колонии цианобактерий и стали готовить почву, причём в прямом смысле этого слова, для выхода на сушу живых организмов. Буквально пару лет назад в Китае были обнаружены докебрийские отложения, в которых были опознаны грибы со спорами. Их возраст (635 миллионов лет) превышал возраст многим известной эдиакарской биоты. Тогда, видимо, что-то пошло не так и грибы не сумели на суше закрепиться. Но они не отчаялись и решили повторить попытку чуть позже. В этот раз покорять сушу они решили не одни, а рука об руку с одноклеточными зелёными водорослями.
Проблема была в том, что грибам нужны были готовые органические вещества, с которыми на суше была проблема, а зелёным водорослям - вода и защита от жёсткого ультрафиолетового излучения Солнца (озоновый слой планеты тогда или отсутствовал, или был очень слаб). Проблема решилась с объединением в единый симбиотический организм - лишайник, в котором грибное тело (телом) обеспечивало защиту и воду, а включённые в него клетки водорослей были способны к фотосинтезу. Лишайники, появившиеся на суше около 600 миллионов лет назад, уже существовавшие там цианобактериальные маты, а также одноклеточные бактерии и грибы и создали первую почву, то есть подготовили предпосылки для выхода на сушу "настоящих" растений. "Настоящие" ("высшие", "сосудистые") растения решились на выход около 440 миллионов лет назад, то есть незадолго до конца ордовикского периода.
Произошли эти древнейшие наземные растения (вроде Куксонии), вероятно, от харовых многоклеточных водорослей или каких-то водных моховидных. Их особенностью стало появление проводящих тканей, то есть тканей, способных переносить по всему телу растения воду и растворённые в ней минеральные вещества. Вот только нормальных корней у этих "куксоний" ещё не было. Нити-ризоиды лишь очень слабо закреплялись за первопочвенный субстрат и весьма ненадёжно качали из него воду. Так что грибам пришлось помогать и здесь, создавая симбиозы этих растений со своим мицелием. Что ж, эти первые риниофиты в союзе с грибами начали создавать первые прибрежные заросли, чуть что прячась под воду. Но формировался озоновый слой, лишайники и бактерии всё дальше от воды улучшали субстрат и растения начали "ползучую" экспансию вглубь суши.
Но ведь кроме растений и грибов у нас есть ведь и животные! А что же они? Животные тоже забегали на ордовикскую сушу. Вот только не с целью там поселиться и укорениться. Им банально кушать там ещё было практически нечего. Лишайники и первые наземные растения не привлекали ордовикских животных своей жёсткостью (им (растениям и лишайникам) ведь надо было ставить защиту от ультрафиолета). Так что животные, а конкретно, различные представители типа членистоногих выходили на ордовикскую сушу, чтобы найти там безопасность. Ведь нет пищи для консументов 1-го порядка, значит нет и консументов 2-го порядка (хищников). Так что можно было спокойно отдохнуть от борьбы за выживание на морских мелководьях, спариться, а то и отложить яйца в месте повлажнее. Постепенно эти членистоногие обретали всё больше способностей к жизни на суше. Дыхание атмосферным воздухом, например. Но это происходило уже в следующем периоде.
Флора ордовикского периода
Давайте всё-таки разберёмся, что значит "флора"... В широком смысле этого слова - это все фотосинтезирующие организмы. В узком смысле - это только растения, присущие данной местности и данному временному периоду. А растения по современной классификации включают в себя далеко не всех фотосинтезирующих. Сейчас к растениям относятся только зелёные и харовые водоросли и "настоящие" сосудистые растения. Все прочие фотосинтезирующие организмы, которые ещё лет 10-20 назад относились к растениям, теперь выделены в царство Хромисты. А фотосинтезирующие цианобактерии банально и просто ушли в домен Прокариот. А ведь это тоже "флора" в широком смысле этого слова.
Но я буду рассказывать про "узкую" флору ордовикского периода. В принципе, "настоящих" растений тогда вполне хватало. К слову, именно в ордовике одноклеточные растения (в лице зелёных водорослей) смогли впервые в земной истории сформировать основу основ современных пищевых цепей - фитопланктон. Что случилось? Просто фотосинтезирующие организмы смогли оторваться ото дна и приподняться выше, впервые образовав полноценное пищевое сообщество пелагических организмов. Ну это были одноклеточные организмы. Многоклеточные же "фотосентики" не только распространились на морском мелководье, создав достаточно революционное приспособление к грунту (ризоиды), но и совершили подвиг, выйдя на почти безжизненную до этого сушу. Для этого эволюционного прорыва растениями наконец-то были изобретены проводящие ткани. То есть то, что позволяло доставлять воду и растворённые в ней вещества по всему организму растения.
Первыми наземными растениями стали потомки или харовых водорослей, или каких-то водных моховидных растений. Первая версия является более обоснованной. Во-первых, изначально водных моховидных растений, кроме очень примитивных печёночников, так и не найдено. Во-вторых, харовые водоросли ещё в воде создали всё необходимое для выхода на сушу. У них уже появились прообразы корней, побегов и листьев. Итак, водоросли и цианобактерии в ордовике создавали флору моря, а первые риниофиты начали покорять сушу. Кстати, не стоит забывать, что до первых Куксоний на суше уже жили вполне благополучные лишайники (грибы, которые взяли в союзники водоросли и цианобактерии). Лишайники и готовили почву (в переносном и прямом смысле для "настоящих" растений).
Морская фауна ордовикского периода. Часть 1.
Не все знают, что кроме "кембрийского взрыва" была ещё и "ордовикская радиация". Резкое скачкообразное увеличение разнообразия животного сообщества вовсе не ограничилось кембрийским периодом, оно продолжилось и в периоде ордовикском. Замечу, что в названии статьи было бы гораздо логичнее употребить слово "морская", а не "водная". Уж очень мало животных рискнули в ордовике заселить пресные водоёмы. Тем не менее, они всё-таки были и повышали разнообразие животного мира периода. Как и в кембрийском периоде владыками ордовикских морей оставались членистоногие. Мало того, они небезуспешно посягнули на крупный размерный класс, породив настоящих монстров в лице ракоскорпионов. Ракоскорпионы - родственники не раков, а как раз скорпионов (тоже относились к подтипу хелицеровых) - появились ещё в кембрии, но тогда были ещё весьма скромными животинками. А вот в ордовике они разрослись до 2 метров длины, став на время крупнейшими животными периода. С учётом того, что среди хелицеровых крайне редко встречаются мирные фитофаги, они стали ещё и (на время!) крупнейшими хищниками. Нельзя, конечно, не вспомнить про трилобитов. Эти где шустрые, а где медлительные представители уже вымершего класса членистоногих, были, видимо, самыми распространёнными животными в размерном классе "больше 3 сантиметров". А некоторые из них и в крупный размерный класс старались войти (чтобы крупному куску рот хищников только радовался, а поглотить не смог). Действительно, 80-100-сантиметровый трилобит был не по "зубам" (в кавычках, потому что настоящих зубов у беспозвоночных нет) не только ракоскорпионам, но и другим хищникам ордовика.
Крупный размерный класс - это такая штука, за которую надо бороться. В борьбу с членистоногими за почётное место вступили моллюски. Вернее, их самая продвинутая ветвь - головоногие моллюски. Головоногие ордовикского периода ещё мало напоминали современных стремительных кальмаров и каракатиц и интеллектуалов-осьминогов. Они ещё не имели эффективного водомётного движителя, эффективных средств маскировки, да и вообще, были сильно отягощены весьма массивной раковиной. Но вот раковина та, скрывающая мягкое тело моллюска, была поражающих размеров. Даже сейчас 3-10 метров - это весьма внушающие цифры, а уж в ордовикском периоде это было на грани фантастики. Позднеордовикские эндоцерасы (8 метров только раковина + голова и щупальца) уже могли не опасаться никаких ракоскорпионов, а, скорее всего, употребляли их на завтрак, обед и ужин. Так у членистоногих появились опасные конкуренты. Думается, именно тогда все наши членистые друзья задумались о бегстве на сушу и о философии маленького тела. Добавлю, что именно моллюски первыми начали покорять пресные воды. Эффективным фильтраторам - двустворчатым моллюскам - было комфортнее в мутной воде ордовикских рек, чем в ордовикских морях. В море уж слишком многие претендовали на органическую взвесь.
Морская фауна ордовикского периода. Часть 2.
Ордовикская радиация не ограничилась только членистоногими и моллюсками. Взрывное увеличение количества видов (и общего количества живых существ) затронуло и другие типы, позволив им весьма неплохо конкурировать с вышеупомянутыми. Особенно это касается "реликтов" ордовикского периода - иглокожих. А чем не реликты. Уже с первой половины периода известны представители всех 5 ныне живущих классов этого типа (морские звёзды, морские ежи, офиуры, голотурии и морские лилии). Причём до наших дней они дошли практически в неизменном виде. То есть облик морской звезды 460-миллионней давности практически полностью повторял облик современных морских звёзд. А уж в плане внутреннего строения иглокожие отличались завидным консерватизмом. Это вам не хордовые, у которых, что не период, то очередное новшество. К слову, ордовикский период стал буквально вершиной развития типа. В последующих эпохах они никогда не достигали такого разнообразия и никогда так успешно не конкурировали с другими представителями придонных животных.
С хордовыми в ордовикском периоде было посложнее. Они раз за разом выдавали на гора новые и новые эволюционные изобретения, но до их доминирования было ещё далеко. Хотя к концу периода они были весьма многочисленны и весьма развиты. И эволюция их неслась огромными скачками. Начало периода - это личинкохордовые (представьте ланцетника из учебника биологии) и немногие первые позвоночные. Середина периода - уже многочисленные, хотя и мелкие позвоночные, которые пока не изобрели челюсти, но уже обзавелись многочисленными страшными зубами. Это были предки нынешних миног и миксин, а также представители ныне вымершего класса конодонтов. А уже в конце периода в ордовикских морях появились первые существа, которых можно было уже назвать полноценными рыбами. Это были первые обладатели настоящих челюстей (правда, в большинстве случаев беззубых) - плакодермы. Добавлю, что эти "рыбки" в следующих периодах стали просто грозой морей, породив в девоне таких чудовищ, как 10-метровый дунклеостей.
Трагедия конца ордовикского периода
Заканчиваю главы про ордовикский период на минорной ноте, так как кончилось там всё весьма печально... В течение всего ордовика планета медленно и верно остывала. Если в начале периода было среднепланетная температура была в пределах весьма комфортных 18-20 градусов, то уже к его середине достигла современных 15 и продолжила падать. Земля уверенно вползала в своё очередной ледниковый период. Он не был таким масштабным, как оледенения протерозоя, но след оставил изрядный. Над современными территориями Аравии, Сахары, Аргентины возвышался трёхкилометровый ледник. Климат суши стал сухим и холодным, что резко притормозило проникновение на неё первых сосудистых растений и прочих членистоногих "гостей". Виной тому было весьма "неудачное" расположение материков. Огромный материковый массив (более 70% всей суши) в лице Гондваны уютно расположился вокруг южного полюса. Остывание при этом было неминуемым. Неминуемым было и возникновение и рост ледников. Казалось бы, ничего в этом страшного и не было. Ведь суша и так была практически безжизненной. Вот только замораживание огромных масс воды в ледниковых массивах привело к резкому понижению уровня моря. А палеозойская жизнь глубины не любила (в принципе, современная кайнозойская тоже их не слишком уважает) и почти вся была сосредоточена на залитых солнцем мелководьях. Мелководий почти не стало - у жизни начались большие проблемы. На границе ордовикского и силурийского периодов разразилось масштабное ордовикско-силурийское вымирание. Про мел-палеогеновое вымирание (приведшее к гибели динозавров) знают очень многие. Про "Великое" пермско-триасовое вымирание - уже далеко не все. А про ордовикско-силурийское - очень и очень немногие. Хотя это вымирание по "массовости" можно уверенно ставить на второе место по потерям общей биомассы планеты и на третье - по количеству вычеркнутых из планетарной истории видов, родов и семейств. Замечу, что "динозавровое" вымирание в эти тройки вообще не входит. Земля потеряла по разным оценкам от 60 до 85% процентов своего биоразнообразие (вторая оценка, наверное, будет ближе к истине). Особенно сильный удар был нанесён по брахиоподам, двустворчатым моллюскам, иглокожим и рифообразующим организмам. Лишь чуть меньше пострадали трилобиты и первые позвоночные. По факту, в силуре развитие высокоорганизованной жизни пришлось чуть ли не заново запускать. Ордовикско-силурийское вымирание запустило модный среди палеозойских (и частично мезозойских) организмов тренд массово вымирать чуть ли не после каждого периода.
Палеогеография силура
География силура (445-419 миллионов лет назад) совсем не напоминала современную, и мы бы не узнали очертания материков на глобусе силурийских времён. В начале периода она мало отличалась от ордовикской. Северное полушарие было практически свободно от суши. Почти всю его площадь занимал океан Панталасса (его отдалённым потомком является Тихий океан). К экватору жались сравнительно небольшие материки Лаврентия (ныне это восток Канады и северо-восток США), Балтика (Скандинавский и Кольский полуострова, Прибалтика, Северо-Запад Русской равнины) и Ангарида (нынешняя Восточно-Сибирская платформа). Южный полюс окружал, выбрасывая отдельные свои отростки к экватору, огромный южный материк Гондвана. В конце ордовика и начале силура от его северной окраины начали откалываться совсем маленькие (микро) континенты, которые с огромной (для материков) скоростью устремились к своим экваториальным соседям. Авалония сначала на полной скорости столкнулась с Балтией, оставив ей на память свой кусок, ныне ставший Англией, а потом устремилась к Лаврентии, со временем образовав восточное побережье США. Вот такой получился интересный бильярд силурийский времён (от двух бортов в лузу).
Казахстания как "влепилась" с размаху в Ангариду, так там и осталась, образовав её южное подбрюшье. Южная Сибирь, почти весь Казахстан, Монголия, части Китая и среднеазиатских республик сейчас располагаются на том приэкваториальном микроконтиненте. Ближе к середине силура Гондвана всей своей огромной массой двинулась на север, начав покидать окрестности Южного полюса. Попутно она решила избавляться от своих экваториальных "отростков". Независимыми микроконтинентами стали Северный и Южный Китай, Индокитай. В своём движении на север они из-за приэкваториального изначального положения сильно опередили основной массив суперконтинента и практически слились с Ангаридой. Балтика и Лаврентия весь силур двигались навстречу друг другу. Короткого силурийского (всего 25 миллионов лет) не хватило для объединения, которое произошло уже в следующем геохронологическом периоде. При этом, помимо сближения друг с другом, оба материка вполне себе ходко шли на север.
В общем, табакиевское "А мы уйдём на север, а мы уйдём на север" было вполне себе девизом всех уважающих себя материков в силурийском периоде. Все шли на север, заодно освобождая Южный полюс от огромных массивов суши и делая общепланетный климат теплее. Пройдёт совсем немного времени и Балтика с Лаврентией сольются в Лавруссию, а потом, присоединив к себе Ангариду и убежавшие осколки Гондваны, образуют первый северный суперконтинент. Но это будет уже значительно позднее силура.
Мир силурийского периода. Климат и условия жизни
Силурийский период (или силур) является одним из самых коротких геохронологических периодов (25 млн. лет). Короче силура только два кайнозойских периода: неоген и ныне идущий четвертичный период. Но в эти 25 миллионов лет (буквально миг в истории планеты) вошло столько событий, что его небезосновательно можно назвать одним из самых важных периодов в истории Земли. Начало силурийского периода было достаточно печальным. Продолжалось позднеордовикское оледенение, регрессия мелководных тёплых морей и связанное с ними ордовикско-силурийское массовое вымирание живых существ. Было холодно и голодно для переживших вымирание организмов. Среднепланетная температура в начале периода едва превышала 12 градусов (сейчас - 15), а содержание кислорода не дотягивало до 15%, что было явно недостаточно для уже высокоразвитой жизни.
К середине периода жить стало явно лучше и веселее. Потеплело. Стало даже более тепло, чем сейчас, а к концу периода даже почти жарко (17-18 градусов). Нет, кратковременные похолодания и даже оледенения случались. Куда ж было от этого деваться?! Ведь и в силуре огромная континентальная масса продолжала концентрироваться вокруг южного полюса, хотя уже и двинулась на север. К середине периода значительно повысилось и содержание кислорода в атмосфере и гидросфере. Оно ещё не достигло ордовикских значений, но уже позволяло вполне себе комфортно чувствовать аэробным организмам. Тем более, и мелководные моря вполне себе восстановились. А раз восстановились места обитания, да и кислорода стало вполне хватать, то живые организмы "дали" радиацию, сравнимую с той же ордовикской. А уж 7-процентное содержание в атмосфере углекислого газа давало прямо-таки избыток питания для продуцентов. Поэтому растения, делавшие в ордовике только робкие попытки выхода на сушу, просто просились на просторы материков в силуре. С учётом того, что там стало тепло и влажно, это был весьма обоснованный ход. Если в начале периода суша была почти безжизненной пустыней, то к его концу уже начала покрываться первыми лесами.
Флора силурийского периода
Следует отметить, что понятие "флора" относится не только к растениям в современном понимании этого слова. Это и "настоящие" растения (зелёные и харовые водоросли и высшие сосудистые растения), но и их близкие (красные водоросли) и весьма дальние (вроде радиолярий) родственники. Все растительные "родственники" в лице многочисленных водорослей (кроме вышеупомянутых зелёных и харовых), к слову, сейчас скопом без разбора отнесены к царству Хромисты. Хотя те же радиолярии менее родственны красным водоролям, чем люди и подберёзовики между собой. Но это всё флора. Более того, к флоре мы относим и те же подберёзовики, которые не Растения и не Хромисты, а и вовсе Грибы. Что поделать, "флора" - это понятие давно сложившееся, но устаревшее.
Что же с флорой происходило в силурийском периоде? Да много чего. Силурийский период хоть и был весьма коротким, но очень важным в эволюционном плане для очень многих групп организмов. Для флоры планеты можно выделить три основных момента. Первый - это окончательное эволюционное разделение растений на низшие (зелёные и харовые водоросли) и высшие (сосудистые растения). Разделение началось ещё в ордовикском периоде, но в силуре уже стало ясно, что сосудистым растениям не по пути с остальными представителями растительного царства. Отсюда вытекает и второй момент. Сосудистые растения в силуре решили начать рвать с водной средой обитания и переселяться на пока ещё почти безжизненную сушу. Их ползучее проникновение из зоны прибоя в прибрежные зоны, затем в пресные воды, а затем и на "настоящую" сушу, привело к "изобретению" особых спор с плотной оболочкой, чтобы не зависеть от большого количества влаги при размножении. Немного прервусь, чтобы пояснить про "сосудистость" высших растений. У растений полностью водных нет особых предпосылок для создания особых клеток и особых тканей, которые будут "таскать" воду с растворёнными в ней нужными для растения веществами по всему организму. Вода и так всюду. А вот даже условно-наземным растениям такие ткани понадобились. Ксилема - чтобы доставить воду и минеральные вещества к фотосинтезирующим частям. Флоэма - чтобы продукты фотосинтеза "растащить" по всему растению. Эти ткани образуют своего рода сосуды - тонкие трубочки. Отсюда и название.
Удивительным будет момент третий. Далеко не сразу сосудистые растения стали главными на силурийской суше. Уверенное первое место в наземной силурийской флоре занимали грибы. Собственно, грибы, вернее, та часть грибного царства, что называется грибами высшими, это истинно силурийские организмы. В том плане, что возникли они в массовом количестве как раз в силуре. Нет, конечно, первые образцы высших грибов (в союзе с водорослями и/или цианобактериями, то есть лишайники), уже делали весьма успешные попытки выхода на сушу не только в силуре или ордовике, но даже в кембрии и, по некоторым данным, в докембрии. В силуре же они стали многочисленными и разнообразными организмами. Причём организмами гигантскими. В конце силурийского периода прототакситы стали самыми крупными и неприхотливыми представителями сухопутной флоры. Вырастали аж до 8 метров высоты и жили достаточно далеко от водоёмов. Они точно не были растениями. Большинство учёных считает их грибами-аскомицетами (отделом подцарства Высших грибов).
Есть только вопрос: как же питались эти гигантские грибы? Микоризу им было образовывать пока не с кем. Готовых органических веществ вроде тоже бы неоткуда взять. Скорее всего, эти сморчки на максималках были чем-то вроде огромного растущего вверх лишайника (у 98% современных видов лишайников таллом образуют как раз сумчатые грибы-аскомицеты). К слову, именно с силурийского периода стоит забыть о каких-то признаках водного существования представителей грибного царства. Они стали (а может и были изначально) сухопутными организмами.
Морская фауна силура. Членистоногие
Морская фауна силурийского периода (443-419 миллионов лет назад) весьма сильно пострадала от последствий ордовико-силурийского массового вымирания. Особенно сильно потеряли в видовом и биомассовом разнообразии представители брахиопод (животных, похожих на двустворчатых моллюсков, но обладающих иной анатомией и физиологией) и членистоногих. В принципе, и те, и другие достаточно быстро (за пару-тройку миллионов лет) восстановили своё разнообразие. Особенно быстро это получилось у трилобитов. Это древнейший (известный ещё из кембрийского периода) класс (или подтип) представитель типа Членистоногих. Несмотря на древность, трилобиты были весьма прогрессивными животными что в кембрии, что в силуре. Возможности к достаточно быстрому плаванию, продуманный ротовой аппарат, способности занимать самые разнообразные экологические ниши (от придонных детритофагов до пелагических хищников. А уж зрение у них и вовсе было уникальным. Трилобиты первыми додумались до сложного фасеточного глаза, да ещё и хрусталик не из белка создали, а выточили из кальцита. По этой причине, при линьке трилобиты меняли не только внешнюю глазную оболочку, но и хрусталик. В общем, воплощение членистоногих палеозоя. Тем более, что трилобиты весьма неплохо перенесли ордовико-силурийское вымирание, сохранив более половины ордовикских видов.
Но не они стали членистоногими №1 в силурийских морях. Трилобитам не дали этого сделать их троюродные братья из класса меростомовых - ракоскорпионы. Они, как и трилобиты, известны ещё из кембрийского периода, но именно в силуре, избавившись от множества конкурентов, ракоскорпионы развернулись во всю ширь и всю длину. А длина впечатляла. Отдельные экземпляры на вкусной и калорийной животной пище вырастали до 2-2,5 метров. Мощные конечности позволяли буквально бегать по дну, а не менее мощный хвост был отличным движителем при плавании. В силурийских морях никто не мог справиться с этими хищниками, пока в конце периода не появились крупные плакодермы ("панцирные" рыбы). К слову, мощные конечности ракоскорпионов вполне позволяли им передвигаться и по суше. Естественно, они этим вполне себе пользовались. К концу силурийского периода большая часть ракоскорпионов размножались не в морях,, а на суше. Единственные дожившие до нашего времени их ближайшие родственники - мечехвосты - поступают точно так же. Менее же крупные родичи ракоскорпионов (многие прочие представители подтипа Хелицеровые) и вовсе решили окончательно переселиться на сушу. Но это уже совсем другая сказка.
Морская фауна силура. Моллюски
Силурийский период начался 443 миллиона лет назад и закончился 419 миллионов лет назад. Это очень маленький геохронологический период (меньше только неоген и ныне идущий антропоген кайнозойской эры), но весьма значимый для эволюции всех ныне существующих типов животных. А особо отметился силурийский период просто лютой конкуренцией за место в крупном размерном классе и за роль главенствующего апекс-хищника между представителями хордовых, членистоногих и моллюсков. Рыбы в лице крупных плакодерм и ракоскорпионы, конкурируя и между собой, медленно, но верно вытесняли моллюсков из числа главенствующих видов животных. Головоногие ортоцерасы, чей расцвет пришёлся на предшествующий ордовикский период, достаточно быстро сдали свои позиции крупных хищников открытого моря. В течение силурийского периода раковины ортоцерасов всё больше и больше закручивались. Скорость ортоконов ордовикского периода была принесена в жертву защищённости и маневренности. А это уже признаки не хищника, а его предполагаемой жертвы. Головоногие силура измельчали и предпочли путь не современных кальмаров, а наутилоидный путь относительно небольших, сравнительно медленных, но эффективных хищников верхнего водного слоя. В общем, в силуре головоногие моллюски утратили шанс на мировое господство. Членистоногие и, особенно, позвоночные не дали им его реализовать. Стремительные ортоцерасы ордовикского периода сменились медлительными, отягощёнными массивной закрученной раковиной, наутилоидами. Остальные же моллюски продолжали цвести и пахнуть. Двустворчатые потихонечку вытесняли с привычных мест обитания брахиопод и прочих плеченогих (это очень похожие на моллюсков животные с раковиной, но отличающиеся от них анатомией и физиологией). Брюхоногие же начали осваивать прибрежную зону и сушу, благо, растения для питания там уже существовали.
Морская фауна силура. Иглокожие
Иглокожие это очень интересный тип животных. Я бы даже сказал, что уникальный. Они несомненно относятся ко вторичноротым, то есть являются в какой-то мере нашими родственниками. Вот только у них проявляется столько различий в анатомии и физиологии с другими типами животных, что и хордовые родственники, что и малородственные первичноротые членистоногие вовсе на иглокожих не похожи. Им свойственна уникальная радиальная симметрия. У них есть уникальная амбулакральная (по сути, гидравлическая) система, отвечающая как за движение, так и за подобие кровообращения. У них имеется интереснейший скелет, который может выступать как внешним, так и внутренним. В общем, это очень непохожие на других животные. Самое интересное то, что на них, похоже, эволюция не слишком-то и влияла. Как появились пять современных классов иглокожих в кембрии и ордовике (ещё было пять классов вымерших), так и просуществовали практически без изменений до нашего времени. На дне силурийских (443-419 миллионов лет назад) мы бы обнаружили почти тех же самых морских лилий, ежей и звёзд, что мы видим и на дне современных морей. С тех пор эволюционные приспособления этого типа были минимальными. Разве что морские ежи обзавелись примитивными челюстями в мезозое, а офиуры приобрели примитивные лёгкие. В общем, если бы мы увлеклись дайвингом в силурийских морях, то увидели бы очень знакомых нам иглокожих. И ещё маленький факт. Иглокожие являются очень стабильным типом животных. В их эволюционной истории нет никаких сильных взлётов и отсутствуют провалы. Уже полмиллиарда лет они такие, какие есть.
Вперёд на сушу и в реки
Ещё со времён ордовикского периода жизнь начала делать пока робкие попытки выхода на сушу. Первыми это сделали животные, принадлежащие к типу членистоногих. Суша для них сначала была зоной безопасности, где можно было спокойно размножаться. Вот только кушать там было нечего. Если только такой же "турист" попадётся. Но в том же ордовике готовился и более массовый десант на неизведанные материковые просторы. Сначала лишайники, потом высшие грибы, а следом примитивные сосудистые растения. Этот позднеордовикский десант полностью изменил прибрежные районы материков уже к середине силура. А ближе к концу периода, когда сосудистые растения решили проблему размножения без большого количества воды, то жизнь устремилась уже и в глубины суши. Конец силура - это время появления первой пышной наземной растительности, первых лесов из первых древовидных растений. Часть членистоногих (насекомые, многоножки, арахниды) именно в силуре предпочли стать полностью наземными жителями, больше не возвращаясь в водную среду. Образованные первыми наземными растительными биотами почвы позволили живым существам освоить и ещё одну зону обитания, которая до силура оставалась безжизненной. Это речные воды. Дело в том, что теперь реки несли с суши массу непереработанной органики. А раз появился пищевой ресурс, значит найдётся тот, кто его использует. Силурийские реки оказались достаточно быстро заселены. Проблема была в том, что иной раз органики становилось слишком много (грибы тогда ещё не включили в полную силу свои редуцентные способности). Как итог, в речной воде иной раз становилось очень мало кислорода (его много уходило в процессе гниения тех самых органических остатков). Но это, в принципе, стало проблемой уже следующего (девонского) периода.
Палеогеография девонского периода
На глобусе времён девонского периода (419-359 миллионов лет назад) мы бы не узнали нашу планету. Привычные очертания материков вовсе не угадывались в тех массивах суши. Да они ведь ещё и на месте не стояли! В принципе, в девоне продолжался ставшим модным в силурийском периоде "бег" материков на север. Причём интересно, что при этом движении северные материки старались слиться между собой, а южная Гондвана всё время теряла свои кусочки. Соприкоснувшиеся ещё в силуре Лаврентия и Балтика в девоне слились в единый континент Лавруссия (или Евромерика). Причём на протяжении всего девонского периода Лавруссия собирала микроскопические осколки Гондваны, которые сбежали от южного суперконтинента на север. Так были присоединены Авалония (ныне кусочки Британских островов и Канады), Иберия (Пиренейский полуостров), Арморика (большая часть территории Франции) и некоторые другие микроконтиненты, которые сейчас входят в состав Южной и части Центральной Европы. Кроме того, Лавруссия ещё и начала вращаться против часовой стрелки, так что отдельные её части (вроде севера Канады и Гренландии) начали занимать привычные для нас места. Другим центром притяжения на севере стал материк Ангарида (или Сибирь). В девоне он занимался тем, что пытался из сбежавших кусочков Гондваны собрать на своей основе будущую Азию. Так были присоединены Казахстания, Амурия. Почти слился с Ангаридой и Северный Китай. Гондвана тоже упорно шла на север, как раз и теряя в этом походе свои окраины. Причём шла гораздо быстрее, чем северные материки, что, собственно, и привело к столкновению в следующем каменноугольном периоде. Гондвана тоже вращалась, но ни как Лавруссия против часовой стрелки, а по часовой. Южный полюс потихоньку перемещался из района современной Бразилии на окраины материка.
Девонский период: условия жизни
Девонский период (419-359 миллионов лет назад) - удивительнейшее время. Время расцвета рыб (не зря девон называют "рыбьей эпохой") и время активнейшей экспансии живых организмов на сушу. Время, когда планета прикинула для себя возможности стать тропическим раем. Человеку, в принципе, в девонский период жить было бы не слишком уютно. И дело даже не в отсутствии привычных растений и животных (как продуктов питания). Дело в недостаточном уровне кислорода и переизбытке углекислого газа. В начале периода кислорода в земной атмосфере было не более 15% (сейчас - 21%). Правда, стоит отметить, что его процент рос с увеличением количества наземных растений и достиг почти 18% к концу периода. С углекислым газом наземные растения тоже активно работали. Ведь для них он не более, чем источник пищи. Так что его содержание в атмосфере упало с 6% в начале девона до 4,5 в конце периода. Такой процент для человека является всё ещё смертельной дозой. Так что если и не скафандр, то кислородная маска точно бы понадобилась. А вот климат был значительно теплее, чем в современности, хотя небольшие ледяные шапки наблюдались на территории современной Бразилии. Стоит, конечно, отметить, что он менялся на протяжении периода. Всё-таки 60 миллионов лет - это не баран чихнул, да ещё и при почти непрерывном изменении конфигурации материков. В начале периода среднепланетная температура превышала 20 градусов (сейчас даже до 15 не дотягивает). К середине девона планета слегка подостыла до 18 из-за деятельности растений. Но и это всё равно значительнее теплее, чем сейчас, поэтому уровень моря был значительно более высоким, и вся планета покрывалась мелководными морями, кишащими жизнью. К концу периода средняя температура ещё более подросла (до 22 градусов), и климат стал гораздо суше. Помимо повышения температуры его подтолкнуло к этому ещё и то, что материки начали собираться во всё более крупные массивы.
Водный мир девонского периода
Девонский период (419-359 миллионов лет назад) - это "рыбья" эпоха. Такого разнообразия представителей этого надкласса никогда не было до и никогда после. Хотя современные рыбы будут побогаче по числу видов и занимаемым экологическим нишам. Правда, современные рыбы представлены в основном одним классом - Лучепёрыми рыбами. Они-то и разнообразны. Лопастепёрые и Хрящевые таким разнообразием похвастаться не могут. В девоне же Лучепёрые только начинали свой путь по захвату морей и океанов. Представлены же они были предками современных осетров и стерляди, то есть Хрящевыми Ганоидами. До появления быстрых и очень разнообразных Новопёрых рыб ещё оставались миллионы лет. Зато представители остальных "рыбьих" классов были лидерами водного мира девонского периода. Ещё вполне себя неплохо чувствовали и были многочисленны и разнообразны Бесчелюстные: конодонты, предки современных миног и миксин и вполне себе рыбообразные остракодермы.
Но ещё более разнообразными и многочисленными были представители Челюстноротых. Эти "новообразования" силурийских морей стали их владыками в следующем девонском периоде. Главными "главнюками" в девонских морях и океанах были, конечно, Плакодермы. Это такие бронированные рыбёшки, вырастающие до весьма приличных размеров. Самым знаменитым представителем класса был, конечно, Дунклеостей. Этот апекс-хищник девона мог вырастать до 6 метров (по некоторым данным - до 9) и весить прилично за тонну. Конкуренцию закованным в броню плакодермам оказывали первые акулы (Хрящевые рыбы). Пока, правда, не очень успешно. Примитивные прото-акулы - кладоселахии - уступали плакодермам в размерах, скорости и свирепости. Поэтому частенько попадали плакодермам на обед, а сами кушали более мелких сотоварищей по надклассу. Более мелкими сотоварищами были представители классов Лопастепёрых рыб и Акантод. Вторые (называемые ещё "колючими акулами") пытались как-то оказаться несъедобными за счёт своих многочисленных колючек и плавников. Первые же, плюнув на попытки доминирования в морях, демонстративно удалились в пресные воды. Там они, правда, вскоре попали в кислородную и кислотную ловушки и вынуждены были выйти на сушу, превратившись со временем в амфибий.
Чем ещё отличались девонские моря? Во-первых, последней попыткой членистоногих попасть в крупный размерный класс (это в воде, на суше они попытались сделать это ещё и в карбоне). Ракоскорпионы - родственники современных мечехвостов - в девоне вырастали до 2 метров. В районе морского дна для них практически не было соперников. Крупные рыбы плавали где-то повыше, крупные аммониты (головоногие моллюски) тоже дно особо не жаловали. Так что ракоскорпионы там буквально резвились, поедая всё, до чего могли дотянуться. Во-вторых, девонские моря стали свидетелями планктонной революции. Одноклеточные организмы, ранее очень сильно привязанные ко дну, внезапно решили поплавать в толще воды. Сначала на это решились представители фотосентиков (фито-планктон), а за ними отправился и зоопланктон, который фотосентиками и питался. За пищевыми ресурсами подтянулись мелкие ракообразные и мальки рыб, за которыми отправились и те, кто ими питался. В-третьих, девонский период ознаменовался возникновением достаточно удачной модели головоногих моллюсков - аммонитов. Причём настолько удачной, что аммониты умудрились просуществовать практически 350 миллионов лет до мел-палеогенового вымирания. Аммониты предпочли защищённость сильно закрученной раковины стремительности силурийских ортоцерасов. До моды отказываться от раковин у головоногих было ещё далеко
Флора девонского периода
То, что происходило с наземными растениями в девонском периоде, учёные назвали "Девонским взрывом". По своему значению для растительного царства Девонский взрыв ничуть не уступает Кембрийскому взрыву для царства животного. Адаптивная радиация первых наземных растений (риниофитов), несмело вышедших на сушу ещё в ордовикском периоде, привела к конце периода к появлению практически всех отделов высших растений (кроме Покрытосеменных). Вот только девонские мхи, плауны, хвощи, папоротники вовсе не походили на современные образцы данных отделов. Если сейчас подавляющее большинство видов этих споровых растений весьма невелики, то в девонском периоде они устремлялись ввысь, достигая порой 20-25 метров. В следующем каменноугольном они и вовсе возносили свои кроны на 45-50 метров. Сначала от первых фито-исследователей суши отделились Моховидные. В начале периода они были весьма похожи на современные стелющиеся экземпляры, но к концу изрядно подросли (до 1-1,5 метров). Выше им было подняться затруднительно, ведь всё-таки они ещё не были сосудистыми растениями и ещё не изобрели проводящие ткани. А значит, испытывали сильные затруднения с прокачиванием воды (и минеральных веществ в ней) через организм.
Изобретение ксилемы и флоэмы (название проводящих тканей у растений) стало величайшим изобретением в растительном мире, которое произошло уже на границе силура и девона. Это сразу же позволило девонским растениям покинуть прибрежные зоны и начать быстрое расселение в глубины суши, всюду туда, где можно было добыть воду из перво-почв. Ещё одним крупным изобретением стало появление настоящих корней, которые позволяли куда более эффективно добраться до почвенной влаги. Сосудистые растения (хвощи, плауны, папоротники) эффективно расселялись в глубь девонских материков, образую первые леса. Особенно им полюбились берега рек и прочих пресных водоёмов. Пресная вода им пришлась больше по вкусу, чем солёная морская. Это, кстати, "сподвигло" пресноводных лопастепёрых рыб к выходу на сушу. Просто древесные растения, хоть и живут достаточно долго, но не бессмертны. Эффективных редуцентов, качественно разлагающих органические останки, в девоне ещё не было. Поэтому "трупы" прибрежных "деревьев" накапливались в реках и озёрах, стремительно превращая их в малокислородные болота, из которых так и хотелось сбежать.
Во второй половине девона растения совершают ещё одно большое изобретение. У них появляется эффективный способ полового размножения - через семена. Появляются Голосеменные растения - отдел (или, скорее, надотдел) растений, которые долгое время господствовали в наземной флоре. Но время их господства наступит чуть позже, когда гигантские споровые почти все вымрут во время так называемого Кризиса карбоновых лесов. Остаётся добавить, что голосеменные девона вовсе не напоминали современные ели, сосны и лиственницы. Хвойные тогда ещё не возникли. Девонские голосеменные были похожи на весьма редких сейчас представителей классов (или отделов по некоторым вариантам классификации) Гинкговых или Саговниковых. Девонским же голосеменным принадлежит честь изобретения ещё и настоящих листьев. Всё-таки у папоротников и прочих споровых настоящих листьев нет.
Позднедевонское вымирание
Традиция живых организмов время от времени массово вымирать никуда не делась и в девонском периоде. Мало того, впервые "вымирательные" традиции появились у живых организмов суши. Ну это понятно. Именно в девонском периоде жизнь на суше начала не существовать, а процветать. Так что и её очень сильно затронуло резкое снижение уровня жизненных условий. Причины вымирания достаточно традиционны для палеозоя. Это похолодание, вызвавшее снижение уровня мелководных морей, а значит потерю жизненных территорий подавляющего большинства морских животных. К слову, такое похолодание могло быть вызвано резким увеличением в девоне количества наземных растений. Уж очень активно они начали изымать из атмосферы парниковый углекислый газ. И это вулканическая активность, которая резко уменьшила количество кислорода в тех же мелководных морях.
Обе причины в комплексе весьма больно ударили по морским сообществам. Традиционно очень сильно пострадали моллюски, брахиоподы, морские членистоногие (это их традиция с кембрийского периода). Но в этот раз очень сильный удар был нанесён и по владыкам девонских морей - позвоночным. За две волны вымирания практически исчезли все бесчелюстные (кроме предков современных миног и миксин), наполовину были прорежены бронированные плакодермы. Сильнейший удар был нанесён и по лопастепёрым рыбам. Особенно пострадали пресноводные виды. Так что ихтиостегалии возносили хвалу всем девонским "рыбьим" богам, что их предки вовремя успели выйти на сушу. Первая же причина (похолодание) создала предпосылки для вымирания сухопутной флоры и фауны. Стремительно вымерли ещё неустойчивые к колебаниям климата древовидные споровые растения, оказавшись в непривычной для себя сухой и холодной среде. Выжили только те, кто не успел далеко "уйти" от источников воды. Они и стали родоначальниками величественных карбоновых лесов.
Вымерли практически все "рыбы", которые упорно старались в девоне превратиться в "лягушек", но так до конца и не успели. Выжили лабиринтодонты (стегоцефалы по-старому) и предки лепонспондилов. Сильно пострадали и наземные членистоногие. Наверное, в виде компенсации следующий период (карбон) стал временем их расцвета. Интересно, что первые "настоящие" шестиножки-насекомые появились незадолго до вымирания и счастливо его пережили. Общие потери составили около 70% всех морских видов животных, более 40% сухопутных и пресноводных, более половины видов наземных растений. Позднедевонское вымирание занимает почётное последнее 5-е место среди "больших" вымираний фанерозоя, но от этого оно не было менее
Фауна суши девонского периода
Если в морях девонского периоды первенствовали позвоночные (с некоторой конкуренцией со стороны крупных членистоногих и моллюсков), то владыками суши в то время (419-359 миллионов лет назад) были только членистоногие. На суше они не торопились в крупный размерный класс. Фауна девонских материков не породила ничего хотя бы сравнимого с величественными гигантами - ракоскорпионами. Но их более мелкие родичи и так неплохо себя чувствовали. Благо на суше большую часть периода у них не было никакой конкуренции. Арахниды (паукообразные) как выбрались на сушу ещё в ордовикском периоде, так и не спешили обратно в морские воды. Позднее (в силуре) к ним присоединились многоножки, а непосредственно в девонском периоде (и изначально на суше) появился самый успешный класс животных за всю историю планеты - насекомые. Действительно, если считать по видовому разнообразию (около 1,5 миллионов в наше время живущих видов) и общей биомассе (конкурентами могут быть только ракообразные), то насекомым нет равных в современных биоценозах суши.
В девонское время насекомые только готовились к владычеству над планетой, ещё не став такими многочисленными и разнообразными. Большинство существ, шныряющих под кронами первых растений, ушедших от воды, были мелки, невзрачны и более всего напоминали современных тараканов. Интересно, кстати, что эволюция насекомых неразрывно связана с эволюцией растений, так как шестиножки - это изначально растительноядные членистоногие. К хищничеству ряд видов подошёл чуть позднее, но это случилось ещё в девоне. В девонском же периоде появились на планете и первые в её истории авиаторы. Первые крылья из внешних покровов вырастили и взмыли в воздух родичи и непосредственные предки современных стрекоз. А за ними и прочие насекомые поспешили обзавестись столь полезным эволюционным приспособлением.
А что же наши предки и родичи - позвоночные! Ведь именно в девоне лопастепёрые рыбы начали исход из бескислородных и закисленных болот на сушу. А они на суше были пока только гостями. Так, выползти, подышать, погреться на солнышке, да поймать на обед зазевавшегося членистоногого. Зарождающиеся тогда амфибии и до сих пор не стали полностью наземными животными (за исключением части червяг и бесхвостых в лице жаб), а тогда и вовсе были рыбами с лапками. Их время придёт позже - в каменноугольном периоде. Но этот же период станет расцветом насекомых и прочих наземных членистоногих.
Палеогеография карбона
В первой половине карбонового/каменноугольного периода южный гигантский материк Гондвана начал вращаться прямо-таки с неприличной для приличного материка скоростью. Буквально за пару-тройку десятков миллионов лет материк буквально опрокинулся по часовой стрелке более чем на 90 градусов. В результате восточные окраины Гондваны (Индостан, Австралия, Антарктида) внезапно стали южными, а африканская часть уплыла на север. На север продолжил упорно двигаться и весь материковый гондванский массив, пока примерно 330-325 миллионов лет назад не случилось знаменательное событие: Гондвана с размаху впечаталась в северную Лавруссию. Столкновение вызвало по всей планете лавинное горообразование и повышенный вулканизм. Землю ещё достаточно долго потряхивало. Кстати, возможно, что эффект вулканической зимы и вызвал похолодание середины карбона и последующее крупное растительное вымирание (кризис карбоновых лесов). Материковые столкновения на этом не закончились. Сибирь/Ангарида догнала с востока Лавруссию и тоже впечаталась в неё, вздыбив вверх Уральские горы. На лице планеты начали явственно проступать черты самого большого континента за всю её историю - Пангеи ("вся земля" с греческого). К концу каменноугольного периода отказывались присоединиться к общепланетному материку только крупные острова у его северо-восточных окраин (ныне это территории Северного и Южного Китая). Но уже в следующем пермском периоде и они не выдержали и завершили объединение, окончательно сформировав будущую Азию. Образовался единый материковый массив, разделённый горами по "швам" столкновений. Бескрайние пространства суши и исчезновение мелководных прогретых морей на большей части планеты привели к иссушению и ещё большему похолоданию климата. Но зато эти явления сильно подстегнули эволюцию самых прогрессивных обитателей суши - амниот-рептилиоморфов.
Карбон. Условия жизни
Каменноугольный период (359 - 299 миллионов лет назад) чаще всего представляют жарким и влажным, а карбоновую сушу покрытой тропическими лесами и болотами. Это относительно верно только для первой половины периода, когда среднепланетная температура составляла 21-23 градуса при обилии мелководных прогретых морей. Но уже в середине периода все существующие материки столкнулись между собой, образовав единый суперматерик - Пангею. Огромный континентальный массив с весьма малым количеством внутренних водоёмов очень сильно иссушил климат, а также нарушил теплообмен океана, встав на пути осуществляющих этот обмен течений. За иссушением пришло похолодание. Вторая половина каменноугольного периода оказалась одной из самых холодных эпох за всё время фанерозоя. Среднепланетная температура на границе карбона и перми была меньше чем сейчас. Сейчас 14,9 градуса, а 299 миллионов лет назад еле-еле до 13 дотягивала. В общем, было прохладно. К счастью, на полюсах не было больших массивов суши, что могло бы спровоцировать новую волну холода. Тем не менее, на территориях современных Индостана и Австралии отмечены следы весьма существенных оледенений. Но зато человек уже смог бы дышать карбоновым воздухом, не используя кислородную маску. Более того, содержание кислорода в атмосфере Земли весьма существенно превышала современную. Временами этот показатель подлетал аж до 35% (сейчас 20,9%) и не опускался ниже 25. Постаралась, конечно, обильная наземная растительность периода. Она же значительно снизила концентрацию в атмосфере углекислого газа до неприличных для палеозоя 0,4 %.
Жизнь в карбоновых морях
Каменноугольный период в морях - это эпоха расцвета "примитивных" типов животных. После позднедевонского вымирания уж слишком сильно пострадали позвоночные и высшие членистоногие. Они были вынуждены долго и мучительно восстанавливать численность и видовое разнообразие, а также не менее долго занимать ранее привычные им экологические ниши. Первенство в карбоновых морях неожиданно получили одноклеточные протисты - фораминиферы. Эти примитивные организмы с минеральным скелетом, который оказался "не по зубам" "хищным" одноклеточным и "невкусным" для многоклеточных организмов. Вместе с ними "расцвели" одноклеточные же радиолярии и условно многоклеточные губки и мшанки. Избавившись от последствий вымирания позднего девона, ускоренными темпами стали развиваться кораллостроители ("бронированные" представители Стрекающих и прочих Книдарий), Брахиоподы и родственные им Моллюски. Активно эволюционировали и создавали видовое разнообразие Кольчатые и Круглые черви. Вот только представители якобы господствующих в карбоне типов как-то не хотели себя ярко проявлять. Членистоногие и Позвоночные в морях упорно не хотели восстанавливаться после позднедевонского вымирания. Ракоскорпионы окончательно попрощались с миром живых, трилобиты (практически символы палеозойской эры) резко сократили своё видовое разнообразие и общую численность. Позвоночные же в лице рыб вели себя крайне осторожно. Часть из них (и немаленькая ещё в предыдущий девонский период) предпочла вылезти на сушу и стать амфибиями, а впоследствии и амниотами-рептилиоморфами. Лопастепёрых очень сильно потрепало предыдущее вымирание. Хрящевые только начали превращаться из примитивных организмов в грозных акул и не менее грозных, но скрытных скатов. А Лучепёрые только-только начали разгонять свои эволюционные процессы. В общем, карбоновые моря населяла необычная для позднего палеозоя биота. Очень большое разнообразие Протист, Книдарий, Моллюсков, Брахиопод, различных Червей. В то же время резкое снижение (если сравнивать с девоном) всех Позвоночных и относительно крупных Членистоногих. Два самых прогрессивных типа животных решили сосредоточится в каменноугольном периоде не в морях, а на суше.
Флора карбонового периода до Большого Кризиса
Влажный климат первой половины карбонового/каменноугольного периода (359-299 миллионов лет назад) сделал своё дело: почти вся планета покрылась величественными дождевыми лесами. "Кустарники" девона вымахали вверх до 45 метров и "потолстели" до двухметрового диаметра. Вот только привычных пород деревьев мы бы в этих лесах не увидели. До появлению привычных нашему глазу сосен и берёз оставались ещё долгие миллионы лет. К слову, и грибочков в карбоновых лесах насобирать бы не удалось. Силурийские и девонские прототакситы уже вымерли, а прочие грибы не научились ещё образовывать плодовые тела и сотрудничать с корнями деревьев. Мало того, они даже отмершую древесину перерабатывать ещё не могли (сейчас это у них успешно получается). По этой причине карбоновые леса были непролазными и буквально заваленными мёртвыми стволами. Позже эти стволы, занесённые осадочными породами дали мощнейшие залежи каменного угля. Так что разрабатывая каменноугольные месторождения, мы просто расчищаем древний-предревний лес. Что же за "ёлки" росли в этих лесах? А росли в них те, чьи далёкие потомки сейчас скромно скрываются в подлеске и даже не претендуют на образование древесных форм.
Состояли карбоновые леса из гигантских споровых растений - предков нынешних папоротников, хвощей и плаунов. Представьте себе папоротник, вознёсший свои вайи на высоту 40-45 метров, или 30-метровый болотный хвощ, привычного нам облика, но непривычного размера! Каково? Впечатляет ведь, однако! В самых влажных местах, а то и вовсе посреди болот, росли плауновидные лепидодендроны и сигиллярии, возносящие свои равномерно ветвящиеся побеги (строго по два от каждой ветки) по спирали усеянные небольшими листочками, на высоту 20-30 (сигиллярии) и даже 45-50 метров (лепидодендроны). Скорее всего, они были прямыми потомками (безо всяких там боковых ветвей) силурийских псилофитов. Собственно, большое количество влаги жизненно необходимо всем споровым растениям, так как без неё невозможно их половое размножение. Хотя, "если в кране нет воды", то споровые многие поколения могут обходиться и бесполым (при помощи собственно спор). Именно так решили хвощевидные каламиты и лепидофиты, а также древовидные папоротники, поселившиеся уже достаточно далеко от открытых источников воды.
Каламиты выглядели точь-в-точь как современные полевые или болотные хвощи, только увеличенные раз в 50. Правда, в отличии от современных, они сумели вырастить у себя хоть и редкие, но настоящие листья, достигающие метровой длины. В карбоновых лесах первой половины периода это были самые часто встречающиеся растения. Древовидные папоротники поселились ещё дальше от открытых водоёмов. К слову, они уже в каменноугольном периоде попытались решить проблему зависимости полового размножения от воды. И решили достаточно успешно, сумев независимо от прочих эволюционных линий изобрести размножение при помощи семян. Так что в карбоне возносили свои вайи к небесам не только "настоящие" споровые папоротники, но и "ненастоящие" семенные.
Вымершие семенные папоротники, собственно, сейчас предлагается вывести из отдела Папоротниковидных и отнести их к Голосеменным, а морфологическую (внешнюю) схожесть считать результатом конвергентной эволюции. Есть только одна маленькая проблема. В карбоновый период из девонского сумели перейти уже почти настоящие семенные растения - кордаиты. Кордаиты как и семенные папоротники образовывали и споры, и семена, но начали это делать за несколько десятков миллионов лет до них. Считается, что кордаиты стали предками современных хвойных растений (но не всех остальных Голосеменных). В принципе, эта версия (а также предположение о нескромной полифилетичности данного отдела) вполне себе подтверждается последними исследованиями. В общем, семенные растения готовили себе почву (в прямом и переносном смысле) уже в первой половине карбона. После полной полярной лисички, пришедшей к каменноугольным лесам 305-310 миллионов лет назад, они уже развернулись во всю ширь и прочие измерения.
Кризис карбоновых лесов - великое растительное вымирание
Карбоновый или каменноугольный период (359-299 миллионов лет назад) был достаточно разнообразной эпохой в геологической и биологической истории Земли. Начался период жарким и влажным климатом, в котором буквально заполонили сушу планеты тепло- и влаголюбивые споровые древовидные растения в лице гигантских хвощей и плаунов. Чуть позже к своим коллегам по споровому цеху присоединились и гигантские древовидные папоротники, которые предпочли более высокие над уровнем моря и более сухие области. Уже возникшие к тому времени голосеменные растения оказались вытеснены в самые высокогорные и сухие области. В принципе, им там в отсутствии конкуренции со стороны споровых было вполне комфортно. Проблемы у гигантских споровых растений, которые образовали практически бесконечные дождевые леса экваториального и тропического поясов (а других тогда практически и не было) новорожденной Пангеи, начались с похолодания и общего иссушения где-то к середине Башкирского яруса (323-315 миллионов лет назад).
Окончательно сформированная Пангея образовала огромный континентальный массив. Естественно, что до его середины, как птицы до середины Днепра, не долетали влажные и тёплые воздушные массы. Как-то далековато было. Да и поменьше стало этих самых влажных и тёплых воздушных масс. Огромная Пангея колом стала посреди океана, перекрыв большую часть тёплых течений. Земля начала стремительно охлаждаться, а в начале следующего Московского яруса на территории бывшей Гондваны пришло масштабное оледенение. Самое интересное, что это оледенение больше повлияло на растительность не Гондваны, а недавно присоединившихся к ней Лавруссии и Сибирии. Если гондванийские леса, которые и так состояли из холодоустойчивых и засухоустойчивых папоротникообразных и голосеменных, хоть и распались из единого массива на относительно изолированные части, но выжили, то леса северной части Пангеи, состоящие из влаголюбивых плаунообразных, были практически уничтожены. Только они начали заселяться более или менее приспособленными к новому сухому и прохладному климату папоротникообразными и голосеменными, как начался новый пик похолодания и иссушения в Касимовском ярусе (этот ярус, кстати, носит название моего родного города!). От сплошных лаврентийских дождевых лесов остались только жалкие островки, в которых выжили только голосеменные. Споровые растения с тех пор в северной части Пангеи стали навсегда угнетены и малоразмерны.
В итоге, на границе карбонового и пермского периодов почти полностью поменялась наземная флора. Сплошные дождевые леса из древовидных споровых сменились отдельными рощами голосеменных и редких папоротникообразных, приспособленных к сухому и прохладному климату. Вымирание растений повлекло за собой и вымирание животных, которые были достаточно жёстко привязаны к растениям в плане питания и местообитания. Вымерли первонасекомые, приспособленные к питанию споровыми растениями. Вымерли многие амфибии карбонового периода (времени расцвета стегоцефалоподобных). Особо большие жертвы были среди тех, кто уже начал превращаться в рептилий, но ещё в них не превратился (рептилиоморфы). Тех же, кто в рептилий превратится уже успел, тех ждал эволюционный взрыв. Именно в Касимовском ярусе началась стремительная радиация рептилий (диапсид и синапсид).
Флора карбонового периода после массового вымирания
Кризис карбоновых лесов - это масштабное изменение (вымирание, собственно!) растительных биоценозов суши, случившееся в диапазоне 310-305 миллионов лет назад. Вызван был этот кризис похолоданием и иссушением климата. Первому виной были сами леса. Они так эффективно избавляли атмосферу от углекислого газа, что его количества перестало хватать на то, чтобы достойно обеспечивать парниковый эффект. Второе стало следствием того, что на планете образовался единый огромный континентальный массив - Пангея. Для его внутренних областей уже никакой влаги просто не хватало. На карбоновой флоре это немедленно отозвалось, причём намного больше второе, чем первое. Почему? Да потому, что основное "население" лесов карбона до Кризиса - это гигантские споровые растения. А, во-первых, их корневая система ещё не настолько была совершенна, чтобы эффективно выкачивать из земли влагу, а, во-вторых, уж очень сильно споровые привязаны к воде в плане размножения.
В общем, сухие края споровым растениям оказались недоступны. Этих краёв было немало и до появления Пангеи, а уж с её образованием большая часть суши стала похожа на холодную пустыню в плане климата. Не сказать, что споровые сразу сдались. Древовидные родичи современных хвощей, плаунов и папоротников во влажных и тёплых областях (а такие места ещё были по берегам экваториальных рек) они вполне благополучно просуществовали до конца триаса. Но остальной мир принадлежал уже другим растениям. Тем, которые ещё до кризиса сумели изобрести способ полового размножения с помощью семян. В принципе, ископаемые останки семенных растений известны ещё из отложений верхнего девона, но именно в конце каменноугольного периода они стали доминирующей формой растительной жизни на суше. По большей части они были похожи на современные гинкговые или саговниковые, а то и на самые обыкновенные "докризисные" древовидные папоротники (правда, с семенами!). Но на севере Пангеи уже вовсю шумела первая тайга, в которой росли кордаиты - прямые предки современных елей и сосен. Голосеменные растения оставались растительными владыками суши ещё более 200 миллионов лет, пока во второй половине мелового периода не начали преобладать цветковые - их эволюционные потомки.
Наземная фауна карбона. Членистоногие
Каменноугольный период или карбон (359 - 299 миллионов лет назад) славен тем, что те животные и растения суши, которые сейчас вовсе не претендуют на крупный размерный класс, в те далёкие времена подхватили вирус гигантизма. Нынешние весьма скромные плауны и хвощи и несколько менее скромные папоротники тогда вымахивали до 45-50 метров высотой, образуя непролазные леса. Родственники нынешних невеликих саламандр вымахивали до 4-6-метровой длины и до 1,5 тонн веса. Но ещё больше поражали воображение карбоновые членистоногие суши. Нынешние Многоножки (это даже не класс, а надкласс, объединяющий представителей живущих ныне 4 классов этих членистоногих, родственных Насекомым) по сравнению с ними весьма скромны. Такими "гигантами" мира современных Многоножек являются, например, гигантская сколопендра (класс Губоногие многоножки) - более 40 сантиметров в длину и жуткая угроза для прочих беспозвоночных и даже мелких позвоночных. Да даже 25-30 сантиметров некоторых современных Двупарноногих выглядят истинным гигантизмом.
Но это ничто по сравнению с карбоновым периодом. Артроплевры (относились к классу Двупарноногих) вымахивали до 3 метров длины и до 50 килограмм веса. Правда, хищниками эти гиганты не были. Питались самые большие за всю историю членистоногие суши или растительностью, или детритом, возможно, не брезговали падалью. Активными хищниками, как часто изображают их художники на картинах каменноугольного периода, они не были. И таких весьма крупных многоножек (мирных фито- и детритофагов и хищных особей) по карбоновой суше ползало немало. Ещё больше поражают воображение шестиногие представители фауны данного периода. Насекомые - это сестринская группа Многоножкам, но эволюционно более молодая. Если первые Многоножки начали исследовать сушу уже в середине силура, то первые Насекомые на это осмелились только в начале девона. Правда, уже в конце девонского периода Насекомые первые на планете начали активно осваивать воздушную среду. В карбоне шестиножки не только продолжили быть активными летунами, но и значительно прибавили в размерах. Кто такие Насекомые сегодня? С одной стороны, это самый успешный класс живого мира по видовому разнообразию (по разным подсчётам - от 1 до 2 миллионов видов, что может составлять до 80-85% всех видов животных). С другой, современные Насекомые принадлежат исключительно к малому размерному классу.
Да, некоторые жуки могут вырастать до 15-17 сантиметров и весить до 80 грамм, а некоторые бабочки могут распахивать крылья до 40-45 сантиметров. Но эти достижения невелики, если сравнивать с современными позвоночными, и невелики, если сравнивать с палеозойскими предками современных шестиножек. Стоит, правда, отметить, что видовое разнообразие карбоновых насекомых было невелико. Самые многочисленные и эволюционно продвинутые современные отряды: жесткокрылые (жуки), чешуекрылые (бабочки), перепончатокрылые (осы и пчёлы), двукрылые (мухи и комары) появились только в меловом периоде и эволюционировали совместно с Покрытосеменными растениями. В карбоне Насекомые были представлены самыми примитивными отрядами класса, но с весьма крупными представителями. Одна стрекозоподобная меганевра чего стоит! Размах крыльев до метра и вес до 250-300 граммов сделали меганевру крупнейшим насекомым (да ещё и летающим!) за всю историю существования класса. Такие размеры позволяли охотится (а гигантские стрекозоподобные карбона, как и их личинки, являлись активными хищниками) не только на собратьев по классу, но и на позвоночных животных. Не одна "ящерка" карбона пала жертвой этих стремительных воздушных хищников.
А что вы скажите про предков современных тараканов и термитов, которые вырастали до 30-40 сантиметров длиной и были весьма упитанными (до 300 граммов)? В общем, класс Насекомых в каменноугольном периоде наслаждался гигантизмом. Большинство учёных ранее считало, что причиной этому было высокое содержание кислорода в атмосфере (до 35% против нынешних 21) и высокое парциальное давление того же кислорода. Дескать, это сильно облегчало пассивное трахейное дыхание насекомых, что и позволило развернуться им в плане размеров. Сейчас эта гипотеза уже практически опровергнута. Версий много, но мне лично кажется, что "членистоногий" гигантизм стал следствием отсутствия конкуренции. Как только появились в достаточном количестве активные хищники-амниоты, так и пришёл конец гигантским членистоногим.
Наземная фауна карбона. Амфибии
Карбоновый (каменноугольный) период (359-299 миллионов лет назад) - это время расцвета не только членистоногих суши, но полуводных-полусухопутных её обитателей - амфибий. К современным Беспанцирным амфибиям амфибии карбона имели только опосредованное отношение в том смысле, что только некоторые из них (причём достоверно неизвестные) стали предками амфибий нынешних. Собственно, четырём основным признакам амфибий не всегда удовлетворяют и современные амфибии, что и говорить про те давние времена. Эти четыре признака следующие: обязательная полностью водная рыбообразная личиночная стадия; откладывание яиц без дополнительных оболочек и с малым запасом питательных веществ в воду, кожное дыхание в дополнение к лёгочному, водно-наземное существование взрослых особей.
Если полностью следовать этим признакам, то настоящими амфибиями не являются многие современные жабы, червяги и саламандры. Первые и вторые зачастую игнорируют и свободноживущую рыбообразную личинку (они неплохо так развиваются внутри или поверх материнского организма), и водную среду размножения. Третьи частенько игнорируют взрослую стадию, навсегда оставаясь личинкой, способной к размножению. Само собой, в карбоне всё могло быть (и было!) так же неоднозначно. Но давайте не будем придираться к мелочам и всё-таки оставим за всеми 4 ветвями карбоновых водно-наземных позвоночных титул амфибий. На самом деле этих ветвей было намного больше, но для простоты учёные выделяют 4 самых типичных: тетраподоморфов, лепонспондилов, темноспондилов и рептилиоморфов. В принципе, эти ветви разделились ещё в позднем девоне, но в карбоне продолжали эволюционировать.
Тетраподоморфы (или ихтиостегалии) - это, собственно, ещё даже и не амфибии, хотя и обладали всеми их четырьмя признаками, хотя четвёртый признак (водно-наземное существование взрослых особей) их касается мало. На сушу эти полурыбы выползали лишь изредка. Погреться или схрумкать на завтрак какое-нибудь неосторожное членистоногое. Их конечности (они даже с количеством костей и количеством пальцев не определились) просто банально не были предназначены для относительно длительного передвижения по суше. Ещё менее для наземного существования были предназначены лепонспондильные амфибии. Их слабые лапки не были предназначены даже для того, чтобы преодолеть пару сотен метров до соседнего водоёма. Эти сравнительно небольшие животные практически всю жизнь проводили в воде, охотясь на мелких рыб и пресноводных беспозвоночных. Скорее всего, являлись предками современных червяг, которые (если с предками сравнивать!) совершили просто огромный эволюционный прорыв, став практически сухопутными животными, хотя и живущими в крайне влажной среде.
Вот темноспондилы - это другое дело. Их карбоновые формы активно осваивали сушу, питаясь ранее считавшими себя неуязвимыми членистоногими. Вода (пресная, кстати), конечно, была для них более привычной средой, но и суша не представляла собой чего-то неизведанного. Тем более, что многие темноспондилы начали отказываться от кожного дыхания, заменяя гладкую тонкую кожу со множеством желез на что-то более бронированное. Остеодермы и даже чешуя не такие уж и редкие "одежды" для этих амфибий. Только в конце карбона, уже испытывая давление со стороны "настоящих" сухопутных - амниот, темноспондилы начали полностью уходить в пресные водоёмы, выполняя там функции крупных засадных хищников или активных рыболовов. В этом качестве темноспондилы просуществовали до второй половины мелового периода, возможно, дав в триасе или самом начале юры начало (простите за тавтологию!) современным лягушкам и саламандрам.
Четвёртая ветвь амфибий - рептилиоморфы, как и первая (тетраподоморфы) не были уже (а первые - ещё!) амфибиями. У них уже начался переход к более совершенному полностью наземному существованию. К концу карбона рептилиоморфы, а также их эволюционные потомки в лице завропсид и синапсид, весьма сильно потеснили "настоящих" амфибий с большинства мест их обитания.
Наземная фауна карбона. Переходные формы тетрапод
Большинство противников эволюции сетуют, что никак не хотят находится среди палеонтологических останков переходные формы. Наверное, тогда им стоит уделить большее внимание каменноугольному/карбоновому периоду, где этих самых переходных форм, говоря словами кота Матроскина "ну просто завались". Нет, ну в самом деле! Ихтеостегалии (переходная форма между рыбами и амфибиями) были? Были! Рептилиоморфы (переходная форма между амфибиями и рептилями) были? Были! А ещё можно вспомнить кучу разных переходных форм между мечущими (как рыбы) икру анамниями-амфибиями и изобретателями "настоящего" яйца - амниотами (которые включают как рептилиоморфов, так и "правильных" рептилий в лице завропсид и синапсид).
Среди этих переходных форм карбона вполне может запутаться профессиональный палеонтолог, что и говорить про простых любителей биологии. Тем не менее, попытаюсь немного разобраться в этой путанице. А начну с ихтеостегалий. Ихтеостегалии (или стегоцефалы - их уже устаревшее название) - внеранговая клада (100% полифилетическая) ранних позвоночных покорителей суши. Они, собственно, ещё представляли рыб. Правда, рыб уже с лёгочным дыханием и настоящими лапками с настоящими пальцами. Вот только с числом этих пальцев ихтеостегалии определиться не могли. Их могло быть и пять (число традиционное для настоящих тетрапод), а могло быть шесть, семь и даже восемь. В общем, сохранившие множество "рыбьих" черт эти существа ещё не тянули на настоящих четвероногих - тетрапод. Поэтому и получили научное название тетраподоморфов (то есть подражающих тетраподам). Тем не менее, эта клада дала начало всем группам "настоящих" четвероногих. Кто-то из ихтеостегалий породил "правильных" амфибий (темноспондильных и лепонспондильных), кто-то решил не останавливаться на достигнутых эволюционных преобразованиях и начал "прокачиваться" до истинно сухопутных существ.
Как и откуда появились эти истинно сухопутные существа, которые сумели избавиться от воды как обязательного условия размножения, изобретя многослойное, с богатым запасом питательных веществ, яйцо - тайна и загадка. Вернее, "как" - это не слишком уж и тайна. Куда большей является "откуда". До сих пор действительно непонятно от кого произошли амниоты-рептилиоморфы. Их предками с одинаковой степенью уверенности могли быть как "настоящие" тетраподы-амфибии (часто в этом подозревают темноспондильных амфибий), так и какую-то ветвь ихтеостегалий. Сейчас всё больше популярности среди учёных-биологов набирает вторая версия. Согласно ей, предки современных рептилий, птиц и млекопитающих не произошли от общих с современными амфибиями предков, а являются их сестринской группой. Более того, всё чаще звучит мысль, что и предки завропсидной и синапсидной ветвей амниот произошли от разных малородственных групп ихтеостегалий.
Несомненным является одно: рептилиоморфы появились. Их ранние версии по анатомии и образу жизни были действительно переходными между между ранними тетраподами и действительно наземными животными. Поздние же дали в итоге всю современную и вымершую коллекцию наземных от диметродона и тиранозавра до соловья и человека. Ещё сравнительно немного лет назад самой ранней формой амниот считалась лавразийская сеймурия. Уже в 21-м веке у этой "зверушки" обнаружились водные головастикообразные личинки. Из амниот сеймурия выпала, но продолжает считаться переходной формой между полуводными и полностью сухопутными тетраподами. И таких переходных и полупереходных форм в карбоне существовало великое множество.
Наземная фауна карбона. Рептилиоморфы
В общепринятом сейчас значении, рептилиоморфы - это самые-самые первые амниоты, ещё не разделившиеся на завропсид и синапсид. Но это только общепринятое для простоты значение. На самом деле всё намного сложнее. Во-первых, с точки зрения кладистики (а это сейчас "главная" точка зрения в систематике живых существ), рептилиоморфы - это все ныне живущие и вымершие амниоты. Во-вторых (если от кладистики отойти), рептиолиморфы - всего навсего подкласс амфибий, который сумел отойти от воды в плане размножения. В-третьих, по множеству современных данных, завропсиды и синапсиды произошли от разных линий амфибий-анамний, которые (скорее всего!) разделились ещё в девоне до выхода на сушу.
В общем, рептилиоморфы - это практически стопроцентно парафилетическая группа позвоночных. У них разные предки среди амфибий (и, скорее всего, среди лопастепёрых двоякодышащих рыб девона). У них различные эволюционные потомки. Объединяет эту группу карбоновых полуводных позвоночных, в принципе, всего два признака: попытки создания амниотического яйца с несколькими оболочками и с запасом питательных веществ, и "пропажа" свободноплавающей полностью водной личиночной стадии. Самое интересное, что и то, и другое ещё не факт. Когда-то самым древним рептилиоморфом считалась лавразийская сеймурия. Но уже в 21-м веке у этой "ящерки" внезапно обнаружились "головастики", то есть личиночная стадия, несвойственная "правильным" амниотам. Собственно, с обнаружения личинок у сеймурии и начались непонятки с рептилиоморфами. Учёные так и не смогли решить, кем же их считать. Так и спорят меж собой. Но это же учёные, им бы только поспорить.
Хотя последние исследования показывают, что всё-таки подавляющее большинство рептилиоморфов куда ближе к лепонспондильным амфибиям, чем к "настоящим" амниотам. А тогда получается, что именно рептилиоморфы являются классической такой переходной формой. Кто-то из них (помельче и пошустрей) всё время жил на суше и откладывал яйца, как, например, представители котилозавров, которые совсем недавно считались предками всех амниот. Кто-то (покрупнее, но с кучей амфибийных черт) предпочитал размножаться и охотиться в воде, как трёхметровые антракозавры. А уж внешне все эти полуводные обитатели карбона и вовсе представляли один типаж (если размеров не считать): толстенькой неуклюжей полу-ящерки - полу-тритона. Отлавливаешь первую попавшуюся особь и долго думаешь, кто она есть. То ли амфибия, то ли рептилиоморф, то ли "настоящая" рептилия (диапсидная или синапсидная).
Наземная фауна карбона. Завпропсиды
Наземная фауна каменноугольного периода включала в себя столько разнообразнейших групп, что в них немудрено запутаться. Здесь тебе и ихтеостегалии - что-то среднее между двоякодышащей лопастепёрой рыбой и крупным тритоном. Здесь и "настоящие" амфибии-тетраподы. Здесь и переходная форма между ними и амниотами - рептилиоморфы. Ну и, наконец, "правильные" амниоты - завропсиды и синапсиды. Обе последних ветви появились на свет в последней трети карбона. Первая дала начало современным рептилиям и птицам, вторая - млекопитающим. Их предковой группой несомненно были рептилиоморфы. Вопрос только в том, одни и те же или разные. В последнее время учёные всё больше и больше склоняются к версии, что не только предковые рептилиоморфы у завропсид и синапсид были разные, но разными были и предковые ихтеостегалии и даже девонские рыбы, только принюхивающиеся к суше.
После своего возникновения завропсиды не сильно впечатляли. Это были небольшие ящеркообразные существа длиной 20-40 сантиметров и массой не более 150-200 грамм. К концу карбонового периода они практически не выросли. Да и не с чего им было расти. Чуть ли не изначально завропсиды были оттеснены своими может быть и сородичами, но уж точно конкурентами - синапсидами в не очень-то благоприятные для обитания места. А в местах тех было меньше пищи, меньше воды и куда больше голых камней и палящего дневного солнца (ночами же могло быть и холодновато, как и в современных пустынях). В таких условиях наедать большую тушку было неразумно, да и не с чего. Поэтому в конце карбона завропсиды всё ещё оставались крайне небольшими животинками, но уже с кучей приспособлений для выживания в сухих и малоресурсных областях.
Самой процветающей группой карбоновых завропсид были ареосцелиды. Эти небольшие, но юркие ящерки удачно прятались среди буреломов каменноугольных лесов от первых апекс-хищников палеозойской суши - трёхметровых сфенакодонтов. Кто бы мог предположить, что через 200 миллионов лет уже потомки этих грозных хищников будут прятаться во тьме ночи и лесной подстилке от потомков своих жертв! Именно ареосцелиды стали предковой линией для всех последующих завропсидных линий. В самом конце карбона они задумались об улучшении своего черепа. Кто-то решил оставить прежнее устройство, и они в начале пермского периода стали парарептилями - анапсидами. Кто-то по примеру эволюционных конкурентов - синапсид обзавёлся одним заглазничным отверстием в черепе (правда, расположенном не там). Это были эвриапсиды - предполагаемые предки различных "странных" рептилий последующих периодов, которые не относились к "генеральной" линии, в том числе и ихтиозавров.
Ну а последние потомки ареосцелид обзавелись сразу двумя парами "лишних" черепных отверстий. Это диапсиды. Собственно, только они и уцелели к настоящему времени в эволюционной гонке из всех завропсид.
Наземная фауна карбона. Синапсиды. Начало владычества
Тетраподы и карбон, карбон и тетраподы - это два неразрывных понятия. Стремительная радиация тетрапод наравне с кризисом карбоновых лесов являлись главными биологическими событиями карбонового периода. Тетраподы в карбоне были широко распространены и делились на очень большое количество групп. Одной из них были синапсиды. Они уже не были ни ихтеостегалиями, ни амфибиями, ни рептилиоморфами. Не были они и завропсидами-амниотами, хотя амниотами несомненно были. Синапсиды представляли собой вторую ветвь амниот. Ту, которая проживала и развивалась в более влажном климате и в более благоприятных условиях, чем завропсиды. По этой причине синапсиды и сохранили немало амфибийно/рептилиоморфных черт. К таковым относились влажная, сохранившая множество желез кожа, несовершенная выделительная система и ряд других признаков. Основным же анатомическим отличием ранних синапсид от прочих амниот стало одно парное заглазничное черепное отверстие.
Это отличало их от диапсид (у которых таких отверстий было два), анапсид (у которых этих отверстий вообще не было) и эвриапсид (у которых единственное подобное отверстие находилось совсем не там). Внешне же все амниоты среднего карбона выглядели примерно одинаково: как небольшие толстенькие ящерки. А вот дальше пошли различия и весьма существенные. Синапсиды отделились от базальных амниот около 310 миллионов лет назад. Причём, замечу, что сейчас всё больше набирает популярность версия, что вовсе и не отделились, а просто представляют собой отдельную от других ветвь амниот, "отделение" которой началось ещё на стадии позднедевонских "полурыб". Для данной конкретной статьи это не так уж и важно. Важно то, что во второй половине карбонового периода именно синапсиды заняли лидирующие позиции среди наземных животных карбона.
Причём именно наземных. Синапсиды не совались в водную среду (там лидерами были амфибии и рептилиоморфы), даже и не задумывались о воздушной (там "царили" насекомые, хотя, в принципе, о воздухе в карбоне не задумывался никто из позвоночных). Зато на суше они очень быстро начали лидировать в крупном размерном классе. Если завропсиды так и остались мелкими 20-30-сантиметровыми "ящерками" через миллионы лет после своего "изобретения", то синапсиды скромничать не стали. Сначала они продемонстрировали миру казеид - несколько нелепых бочкообразных "зверушек" с очень малой (если сравнивать с туловищем) головой, которые питались насекомыми (мелкие виды) и растениями (виды крупные. Вот только мелкие виды превышали длиной в метр, а крупные могли и семь метров превышать.
Чуть позже возникли сфенакодонты. Эти "товарищи" были уже хищниками, и весьма немаленькими. Отдельные экземпляры могли достигать 4-5 метров в длину и весить свыше полутонны. Казеиды и сфенакодонты стали крупнейшими сухопутными животными конца карбонового периода, очень сильно обогнав по размерам и по эволюционным усовершенствованиям всех своих конкурентов. Первые освоили в "промышленных" масштабах фитофагство, вторые начали реализовывать дифференциацию зубной системы и задумались о теплокровности. Все эти задумки синапсиды полноценно реализовали уже в следующем пермском периоде.
Палеогеография пермского периода
Насколько же проще бы было ученикам на уроках географии, если бы мы жили в пермском периоде! Материков не шесть, а один (не совсем так, но пока пусть будет). Океанов не четыре, а, опять-таки, один (тоже не совсем так, но об этом ниже). Красота ведь? Красота! Действительно, если бы мы посмотрели на нашу планету с борта МКС 299-252 миллиона лет назад, то не нашли бы знакомых очертаний. Одно полушарие планеты занимал огромный океан - Панталасса. Другое - несколько менее огромный материк - Пангея. Но это если кинуть на планету мимолётный взгляд. Всё-таки география пермского периода была посложнее. Помимо титанического Панталассы было ещё два океана. Они были сильно поменьше, причём весьма сильно. Оба этих океана уютно устроились у восточного побережья Пангеи. Палеотетис пермского периода был размером примерно с нынешний Северный Ледовитый, хотя по сути представлял собой только залив (ну или море!) Панталассы. Интересно, кстати, что остатки этого океана вполне себе просматриваются на современном лике планеты. Это современные бассейны Средиземного, Чёрного и Каспийского морей. Эти моря в кайнозое традиционно называют Неотетисом, но в пермском периоде существовал свой Неотетис. Этот микроокеан (размером раза в три меньше современного Ледовитого) располагался южнее Палеотетиса, отделяясь от него тем, что впоследствии назовут Центральной Азией. Сейчас бывшие акватории Неотетиса принадлежат северным окраинам Индийского океана (Персидский и Бенгальский заливы, Аравийское море). От Панталассы эти небольшие океаны отделяла цепь микроконтинентов, объединённых в две системы. Катазийская система включала в себя будущие территории Северного Китая, Южного Китая и Индокитая, которые в пермском периоде представляли из себя дугу весьма крупных островов, которые отделяли Палеотетис от Панталассы. Киммерийская же система микроконтинентов отделяла Палеотетис от Неотетиса. Сейчас эти микроконтиненты образуют территории Ирана, Тибета и Бирмы. Давным-давно эти территории также представляли собой островную дугу из крупных островов. А саму Пангею разрезал пополам Центральный хребет, очень чётко отделяя друг от друга территории бывших (и будущих, к слову!) Лавразии и Гондваны. Не удивительно, что эволюционная история по разным сторонам этого хребта шла своими путями. Причём зачастую эти пути были непохожи друг на друга. Интересно, кстати, что долгие миллионы лет "север" зачастую обгонял "юг" в находках новых эволюционных решений.
Пермский период. Условия жизни
Вы не поверите, но пермский период из всех древних палеозойских и мезозойских эпох был в плане климата и состава атмосферы больше всего похож на нашу современность. Особенно это можно сказать про его первую половину. Кислорода в атмосфере 22% (сейчас 21), среднепланетная температура 17 градусов (сейчас 15). Да, побольше было углекислоты (примерно в три раза), так что головные боли людям от духоты были бы обеспечены, но это можно же пережить. Климат в пермском периоде впервые получил зональность. Высокие широты получили классическую (для нас!) смену времён года со снежной и морозной зимой (не это ли заставило звероящеров, живших на нынешней архангелогородчине, одеться в меховые шубы?) и жарким сухим летом. Низкие широты получили смену сухого и дождливого сезонов. Стоит, правда, отметить, что климат пермский был значительно суше нашего. В этом была виновата география тогдашней планеты. Все существующие к тому времени материки решили жить дружно и собрались в единый супер-континент - Пангею ("вся земля" по гречески). Никаких ветров не хватало, чтобы донести влагу до центра этого огромного массива суши! Так что пустынь в пермском периоде на планете хватало. Причём, как говорится, на любой вкус. От суровых каменисто-ледяных пустошей высоких широт, где могут выживать только лишайники, до классических раскалённых на солнце песчаных барханов (где выжить не мог никто, так как верблюжью колючку и верблюдов в пермский период ещё не завезли). Во второй половине периода сильно потеплело. Среднепланетная температура подскочила до 22-23 градусов. Повысилось в атмосфере содержание углекислого газа (в 12 раз больше современного уровня). Людям, отправившимся в прошлое, чтобы воочию посмотреть на какую-нибудь иностранцевию, пришлось бы использовать кислородные маски. Повышение температуры усугубило общую аридизацию (иссушение) климата. Пустынь стало больше, а жизнь сосредоточилась на побережье и в долинах крупных рек.
Флора Пангеи пермского периода
В пермском периоде практически вся суша была объединена в один огромный континент - Пангею. Он был буквально слеплен из кусков карбоновых Лавразии (Евроамерики), Ангариды (Сибирии) и Гондваны. Само собой, хотя и слепленные воедино, эти материки прошлого сохранили свои особенности флоры и фауны. Эти особенности были ещё больше подчёркнуты возникшей широтной зональностью и проявившейся (в связи с появлением огромных континентальных просторов) общей арридизацией (иссушением) климата. Величественные каменноугольные леса, состоящие из древовидных споровых растений (предков современных папоротников, хвощей и плаунов) и так очень сильно пострадали в результате Кризиса карбоновых лесов (около 305 миллионов лет назад). Пермский период добавил им ещё больше проблем. Климат стал ещё более холодным и сухим и последние гигантские споровые отступили в долины крупных рек и более или менее влажные места. Больше часть таких долин и таких мест сосредоточились в южном полушарии (бывшая Гондвана). Там они (гигантские и просто крупные споровые) и продержались чуть ли не до конца мезозоя (66 миллионов лет назад). Вот только и в этих областях споровые растения активно вытеснялись более прогрессивными, да и более приспособленными к сухим климатическим условиям, голосеменными растениями.
В пермском периоде они тоже разделились на различные эволюционные группы (хотя изначально это разделение произошло ещё в карбоне). На территориях бывшей Ангариды (северо-восточная часть Пангеи) развивались предки современных хвойных. На территориях бывшей Евромерики (северо-западная часть Пангее) равномерно развивались саговниговые, вельвичевые и хвойные. Бывшая Гондвана славилась лесами саговниковых, вельвичевых и даже сейчас не определённых голосеменных. Пояс островов, отделяющих Панталассу от Палеотетиса (это нынешние территории Северного и Южного Китая, Индокитая, Ирана и Пакистана) славился теми же саговниковыми и вельвичевыми, но также ещё и эндемичными для тех островов в то время гингковыми (чуть позже эти голосеменные распространились на всю восточную часть Пангеи). Чем дальше шёл пермский период, тем больше споровые теряли свою роль в образовании растительного покрова планеты. Голосеменные ближе к середине периода стали истинными растительными владыками Земли. До появления её нынешних хозяев - покрытосеменных - были ещё долгие миллионы лет.
Пермский период. Фауна моря. Начало
Моря пермского периода (299-252 миллиона лет назад) были богаты и обильны на своих обитателей. Позднедевонское вымирание (примерно 374 миллиона лет назад) осталось далеко позади. Вымирания каменноугольного периода затронули в основном сушу, но флора и фауна морей от них практически не пострадала. Обитатели морей карбона плавно перешли в пермь, ещё и подвергшись радиации (стремительному увеличению видового, родового и прочего разнообразия).
Кораллообразующие организмы. Эти создатели коралловых рифов, практически вымершие в конце девона, в карбоне и в перми снова начали образовывать многокилометровые цепи вдоль побережья Пангеи (а отдельных крупных материков в пермский период уже не было, вся суша была объединена в один огромный материк). Но образовывали их не совсем те кораллы, которые и сейчас создают прибрежные ландшафты. Роговые и пластинчатые (бронированные, так сказать) кораллообразующие перми практически полностью вымерли в конце пермского периода. Выжили только те, кто образовывал известковый панцирь по типу кораллов современных.
Членистоногие. В пермском периоде ещё продолжают пугать обитателей морей последние ракоскорпионы. Они измельчали по сравнению со своими более ранними родичами (теперь не более 1 метра в длину), но продолжали вести такой же образ жизни засадных и неспешных придонных хищников, как и в более ранние периоды. Остальные членистоногие пермских морей тщательно работали над первенством в двух группах. Первая тогда впервые образовала (и сейчас образует) крупнейшие образцы зоопланктона (тигровые креветки (15-20 сантиметров в длину) - это тоже зоопланктон). Вторая (более крупная) постаралась стать родоначальниками современных раков и омаров. Обе эти последние группы относились к классу Ракообразных или близких к нему. Собственно, пермский период стал тем периодом, когда более совершенные классы Членистоногих начали в морях активно угнетать менее совершенных. "Высшие" Ракообразные ("настоящие" раки) получили среди них наибольшее преимущество. Самые же "продвинутые" среди Членистоногих Хелицеровые, Шестиножки и их ближайшие родичи предпочли тогда наземно-воздушную, а не водную, среду обитания.
Моллюски. А уж тут многообразие просто зашкаливало. В пермском периоде были представлены все современные группы моллюсков, да ещё плюсом немало вымерших. Самыми "крутыми" из них были Брюхоногие, которые оказались способны к выходу на сушу ещё в карбоне и их морское эволюционное развитие - Головоногие, которые в итоге предпочли водную среду. Первые Головоногие, собственно, появились ещё в ордовике и вовсе не собирались вымирать в результате позднедевонского вымирания, хотя самые их прогрессивные виды и ушли в край иной. Основной особенностью даже пра-Головоногих стала их способность к активному плаванию во взрослом возрасте. И это несмотря на достаточно массивную, хотя и облегчённую благодаря воздушным камерам, многократно завитую раковину. В результате позднедевонского вымирания вымерли именно активно двигающиеся, активно избавляющиеся от наружной раковины виды. В карбоне и перми (а также и в мезозое) цвели и пахли те виды Головоногих, которые обладали развитой наружной раковиной в виде башенок, спиралей или в виде чего-то похожего на закрученные рога барана. Именно от этого внешнего вида идёт название самых распространённых в перми и в последующем мезозое групп Головоногих (одна из немногих морских групп, которые пережили Великое вымирание) - Аммонитов (в честь древнеегипетского бога Амона, который обладал роскошными, много раз закрученными рогами барана). Даже не отпрысками, а, скорее, базальной группой этих моллюсков являются современные Наутилусы. Прочие Аммониты жили долго и счастливо, но вымерли в середине палеоцена (около 60 миллионов лет назад. Современные Головоногие отделились от этих раковинно-закрученных как раз примерно в пермском периоде. Уже в его середине появились экземпляры Головоногих с внутренней раковиной, а ближе к концу и с практически редуцированной этой раковиной. Именно эти экземпляры, прошедшие через "бутылочное горлышко" вымирания и стали нынешними кальмарами, каракатицами и осьминогами.
Пермский период. Фауна моря. Продолжение
Пермский период на то и является последним периодом палеозойской эры ("эры древней жизни"), что он обозначил конец этой самой "древней жизни". Особенно это касается обитателей пермских морей. Великое вымирание, разразившееся в самом конце периода, отправило в небытие 96% видов всех морских существ. В мир иной отправились более 80% родов, половина семейств, более 40% отрядов. Вымирали даже целые классы (к примеру, трилобиты). Но в самом пермском периоде многие из них ещё процветали. Например, брахиоподы. Внешне представители этого типа животных напоминают двустворчатых моллюсков, только обладают не левой и правой раковинными створками, и спинной и брюшной. Внешняя схожесть связана с одинаковым образом жизни, и те и другие являются малоподвижными или прикреплёнными донными фильтраторами. К слову, в отличии от моллюсков мидий и устриц, брахиоподы имеют подобие рук, которые позволяют им создавать дополнительный ток воды для её фильтрования. Казалось бы, эти "приспособы" позволяли брахиоподам быть более конкурентоспособными по сравнению с соперниками по фильтрации. Но увы и ах! Двустворчатые значительно легче пережили Великое вымирание. Плеченогие брахиоподы попытались посопротивляться в начале мезозоя, но сдались. Сейчас они буквально выживают на периферии областей проживания моллюсков. Пермский период стал последним временем их расцвета.
Иглокожие же (интереснейший тип наших "родичей", которому я посвящу отдельный цикл статей) такого периода и вовсе не имел. Никогда они не брали численного или же эволюционного преимущества перед другими группами животных, но всегда, начиная с кембрийского периода находились среди донных хищных животных. Но стоит отметить, что именно в пермском периоде количество классов этого типа было наибольшим: 13 против нынешних 5 и 11 карбоновых. Иглокожие, к слову, весьма неплохо пережили Великое вымирание. Основная их масса вымерла из-за голодного пайка раннетриасовых морей. Наиболее же уверенно в пермских морях чувствовали себя разнообразные рыбы. Моря пермского периода для большинства рыб были намного безопаснее нынешних. Крупные хищные виды рыб ушли в далёкое девонское прошлое. Некрупные ещё "неправильные" акулы и первые хищные ещё несовершенные лучепёрые рыбы не слишком-то терроризировали своих собратьев. Острая опасность исходила только от тех лопастепёрых рыб, которые не решились миллионы лет назад выбраться на сушу. Но это уже будет другая сказка.
Фауна моря пермского периода. Окончание
Эта глава будет о рыбках. О рыбках не золотых, рыбках пермского периода. А эти рыбки (простите, рыбы!) вполне счастливо чувствовали себя в пермском периоде. Кошмарные хищники вроде плакодерм остались в далёком прошлом. Они не сумели пережить Великое "рыбье" позднедевонское вымирание. Эволюция в карбоновом и пермском периодах так и не удосужилась создать крупных морских хищников, так что большинство рыб чувствовало себя безопасно и с удовольствием размножалось, увеличивая разнообразие морской фауны. В лидеры по количеству видов, ареалу и прогрессивным эволюционным приспособлениям в пермском периоде вышли Лучепёрые рыбы. Пока они, правда, обходились малым размерным классом. Да и не были они ещё стремительными собирающимися в огромные косяки Новопёрыми рыбами. Моря пермского периода ещё не знали кильки, сельди, трески и тунца. Лучепёрые перми были ещё медлительными, некрупными, но бронированными хрящевыми ганоидами (предками современных осётров и белуг). Хищниками они не были, спокойно питаясь детритом и придонной растительностью. Лучепёрые рыбы современного типа появились только ближе к концу пермского периода и практически сразу чуть было не отправились всей группой в мир иной в результате Великого вымирания. Это самое пермско-триасовое вымирание рыб вообще очень сильно проредило. Причём так сильно, что в триасе практически всем выжившим классам рыб пришлось начинать свою эволюционную историю заново.
Средний и крупный размерный "рыбий" класс представляли в пермском периоде рыбы Хрящевые - пра-пра-предки современных акул. В пермском периоде они ещё не были стремительными зубастыми рыбинами. Зубов-то было полно, даже в виде пил (лучковых и дисковых), но вот со стремительностью и размерами были проблемы. Крупнейшие перво-акулы пермского периода были незначительно крупнее 2 метров, обладали маломощным "кусем" и только с огромным трудом осваивали экологическую нишу апекс-хищника отдельных участков пермского моря. Но были ещё и рыбы Лопастепёрые. Далеко не все из них решились выползти на сушу в предыдущих периодах и превратиться в тетрапод. Многие из них так и остались обитать на мелководьях и открытых океанических пространствах. Вот они-то и стали крупнейшими морскими хищниками пермского периода. Трёх-четырёхметровая хищная рыбка вполне себе могла быть "королевой" пермских морских биоценозов. В пресные же воды и на сушу Лопастепёрых пермских рыб не пускали их потомки, которые значительно раньше вышли на сушу. Пришло в итоге пермско-триасовое Великое вымирание. 96% морской фауны периода ушло в небытие. Все "рыбки" пермского периода вынуждены были заново начать свою эволюционную историю.
Фауна суши пермского периода. Членистоногие
Миром членистоногих называют обычно предыдущий пермскому каменноугольный период. Но и в перми членистоногие были не менее, а то и более разнообразны, хотя и были они, конечно, уже другими. Ушли в небытие гигантские многоножки - артроплевры, ползающие в полутьме влажных карбоновых лесов, да и леса те из-за изрядной аридизации (иссушения) пермского климата изрядно поредели. Стрекозообразные гигантские меганевры изрядно измельчали и вообще находились на грани вымирания. В принципе, все "древние" карбоновые отряды насекомых и многоножек в пермском периоде чувствовали себя не очень-то и уютно. Многоножки стали небольшими и практически полностью ушли в лесную подстилку. Из всех многочисленных представителей надкласса к концу пермского периода уцелели только представители современных классов губоногих, двупарноногих, симфил и пауропод, да и те чуть было полностью не исчезли в результате Великого вымирания. Потихонечку теряли своё видовое разнообразие, места обитания и общее количество особей владыки карбонового неба - древнекрылые насекомые (те, которые не могут складывать свои крылья над брюшком). Они всё больше и больше уступали небо новой ветви летающих насекомых - новокрылым. Последние появились ещё в карбоне, но именно в перми начался их эволюционный взлёт. Практически все современные отряды насекомых известны как раз из пермского периода. Исключение: самые высокоразвитые из современных насекомых - перепончатокрылые, чья эволюция неразрывно связана с эволюцией покрытосеменных растений, а это уже меловой период.
На поверхности суши для "древних" отрядов насекомых тоже было все кисло. Появившиеся именно в пермском периоде хищные жуки, использующие крылья только для кратковременных перелётов по делам, изрядно проредили, что древних изначально бескрылых насекомых, что вторично потерявших крылья древнекрылых. Немалую помощь им оказали и тараканообразные, ещё в конце карбона отказавшиеся от крыльев и в течении перми упорно эволюционирующих во что-то коллективное, уверенно перерабатывающее даже целлюлозу. В пермском периоде не получилось, но об этом ниже. Неплохо себя чувствовали на пермской суше и представители другой ветви членистоногих - паукообразные. Клещи, так же как и сейчас, зарывались в лесную подстилку и паразитировали на растениях. Скорпионы, внешне и внутренне не отличавшиеся от современных, осваивали пустынные пространства, благо их было на просторах Пангеи более чем хватало. Вот только пауки были ещё неумелые. Паутину-то они плести уже могли, но использовали её не для поимки добычи, а для передвижения и для укрытия и маскировки кладки яиц.
В общем, пермский период был одновременно и временем эволюционной конкуренции, и временем расцвета членистоногих суши. Всё чуть было не испортило (как, в принципе, и для всех!) Великое пермско-триасовое вымирание. Даже для терапсид - истинных владык суши пермского периода в крупном размерном классе, оно обошлось легче, чем для насекомых. Те чуть было просто не исчезли как класс. Единицы выживших в триасе начинали всё заново, да и то окончательно восстановились только к концу юрского периода. Правда, в меловом начался новый расцвет насекомых, но это будет уже совсем другая сказка.
Фауна суши пермского периода. Амфибии
Пермский период был неуютным временем для амфибий. На большей части великого материка Пангеи было сухо и прохладно. Для амфибий, прикованных к воде способом размножения, существенной долей кожного дыхания, да и холоднокровных, такие условия явно раем не казались. Но как не странно, именно пермский период стал пиком амфибийного разнообразия и временем, когда амфибии играли хоть какие-то значительные роли в биоценозах. За счёт чего им это удалось? За счёт грамотного выбора экологической ниши. Когда в начале пермского периода амфибии, рептилиоморфы, парарептилии, диапсиды и синапсиды сели за стол переговоров (шутка, если что!) и начали распределять сферы влияния, то амфибии мудро решили, что на суше в отсутствии наличия многочисленных карбоновых болот им делать особо нечего и степенно удалились в реки и крупные озёра. А вот там-то они стали стеной и упорно не пускали в свою нишу всех остальных.
Наиболее плотно заселяли пангейские реки и озёра лабиринтодонты - темноспондильные крокодилообразные амфибии. Там они по старинке метали икру и вовсю отказывались от эволюционных достижений своих карбоновых предков. Некоторые доотказывались до такой степени, что даже во взрослом состоянии не спешили обзаводиться лёгкими, заменяя наружные жабры своих "головастиков" на внутренние у взрослых особей. А лёгкие им особо-то и не нужны были, так как обитали эти "зверюги" в больших непересыхающих водоёмах, а на суше предпочитали и вовсе не показываться. Кстати, они действительно были "зверюгами" (по размерам, конечно, а не по сути). Видимо, диета из рыбы и своих меньших по размеру и возрасту родичей весьма благотворно на эти размеры влияла. И если в начале периода амфибии ещё скромничали (австралерпетон - до 2,5 метров), то к середине периода стесняться перестали. По самым нескромным подсчётам среднепермский прионозух вырастал до 9 метров и наедал свою тушку до 3 тонн. Хотя по сути он был уже не амфибией, а крупной двоякодышащей рыбой с очень слабыми лапками. В принципе, многие амфибии той поры решили вернуться к своей ранней ещё девонской модели "рыбы с лапками". Перемещаться между водоёмами им не было особой нужды, да и опасно. Даже огромный прионозух на суше стал бы лёгкой добычей для пары-тройки голодных горгонопсов. Поэтому и отказывались пермские амфибии от сильных лап, лёгочного дыхания, да даже от взрослого состояния, предпочитая провести всю жизнь и даже размножаться в виде "головастика".
Но зато уж пресные водоёмы эти"земно"водные держали в ежовых рукавицах. Ещё в начале периода на полное опасностей побережье были изгнаны ещё одни любители воды - рептилиоморфы. Ближе к середине периода был успешно отбит натиск мезозавров - параптелий-анапсид, решивших внезапно стать вторичноводными. Первоначально им это даже удалось, но амфибии опомнились достаточно быстро. Мезозавры просуществовали всего несколько миллионов лет. Нельзя сказать, что амфибии не пытались выбраться за пределы пресноводной ниши. Пытались, но очень лениво, да и вода всё-таки была необходима им для размножения. Наиболее хорошо получилось приспособиться к сухой среде обитания у представителей семейства диссорофид. Какопсы, камакопсы и зигозавры обладали слабочешуйчатой кожей, полностью лёгочным дыханием, достаточно подвижными и сильными конечностями. Они успешно жили и охотились достаточно далёко от источников воды, перебираясь к ним только в период размножения. Пермско-триасовое вымирание стало страшным ударом для амфибий. Его пережили только немногие лабиринтодонты, да предки современных Безпанцирных. А время, когда эти тетраподы могли властвовать над биоценозами ушло навсегда.
Фауна суши пермского периода. Парарептилии-анапсиды
Хотя очень часто говорят, что пермский период - это эпоха сначала просто зубастых, потом зверозубых, а потом и звероподобных синапсид, но всё-таки и в перми нашлась бы группа амниот, которая вполне могла с синапсидами поспорить. Поспорить как в плане эволюционных инноваций, так и в плане видового разнообразия, общей численности и занятым экологическим нишам. Такой группой были парарептилии-анапсиды. Казалось бы, что можно ждать от базальной группы завропсид, с присущими всем базальным группам "предковыми" недостатками? Тем не менее, пермский период стал вершиной эволюционной истории этих рептилий. Парарептилии являлись сестринской группой рептилиям "настоящим" (эврептилиям), но действительно несли в своих организмах множество базальных завропсидных и даже рептилиоморфных (если не амфибийных) черт. Их череп был тяжёл и лишен не предусмотренных самой ранней амниотной конструкцией отверстий (оттого и названы были "зверушки" анапсидами). Строение тела было толстенько-неуклюжим (кроме специализированных видов), физиология ещё весьма напоминала амфибийно-рептилиоморфную. Но несмотря на все недостатки, парарептилии вполне успешно конкурировали с, казалось бы, гораздо более продвинутыми диапсидами и (особенно!) синапсидами.
Парарептилии первыми из амниот задумались о возвращении в водную среду. Диапсиды на это решились только в следующую геологическую эпоху - триас, а синапсиды и вовсе отложили решение этого вопроса до середины кайнозоя. А вот у парарептилий-анапсид уже в ранне-пермскую эпоху появились мезозавры. Этакие юркие небольшие (около метра в длину) водные ящерки. Вряд ли они, кстати, были полностью водными животными, так как никаких следов живорождения или яйцеживорождения у мезозавров обнаружено не было, а значит или плохо искали, или они откладывали яйца на суше, периодически туда выползая. Пермские амфибии, к слову, относительно недолго терпели вторжение пришельцев-анасид в их среду. Уже через несколько миллионов лет после возникновения мезозавры вымирают не выдержав конкуренции. Парарептилии первыми из амниот изобрели бипедализм. Такими отчаянными парнями, ставшими на задние лапы и уверенно побежавшие на них за долгие десятки миллионов лет до архозавров, были, к примеру, обитающие в лесах будущей Германии эвдибамусы, происходящие из группы болозаврид. Первые двуногие планеты, в принципе, просуществовали недолго. Возникнув в ранней перми, они в ранней же перми и тихо угасли. Видимо, эволюционные инновации парарептилий настолько опережали своё время, что были признаны уж слишком явно преждевременными, а оттого недействительными.
Зато ещё одна инновация позволила парарептилиям не только выжить, но и войти в число весьма значимых обитателей суши пермского периода. Этой инновацией стало фитофагство, то есть сосредоточенное поедание растений - опция, которой долго пренебрегали большинство амниот на заре своего развития, да и сильно позже тоже. А уж если вырастить свою мирную растительноядную тушку до приличных размеров, недоступных тогдашним хищникам, то это и вовсе инновация из инноваций! В ранней, да и средней перми у парарептилий это (выращивание тушки, мелких фитофагов хватало) как-то не очень получалось. Видимо, очень мешали разные там синапсидные эдафозавры, да казеиды. Но вот после Олсонового вымирания середины пермского периода растительноядные парарептилии-анапсиды буквально воспряли духом. Ниша крупных растительноядных временно освободилась (вышеупомянутые эдафозавры и казеиды вымерли, а время дицинодонтов ещё не пришло) и её поспешили занять парейазавры и некоторые другие их родичи из группы проколономорф. Это были достаточно крупные "зверушки", достигающие длины 2-4 метра и весящие 700-1000 кг, хотя большинство видов группы было поменьше. В поздней перми парейазавры и их родственники составляли до 60% всех фитофагов на территории будущих ЮАР и России (север её европейской части) (а это "житницы" пермской фауны) и до 95% крупных растительноядных "зверюг". Кстати, на логотипе этого канала терапсид - иностранцевия как раз охотится на одного из парейазавров - скутозавра. Так сказать, моментальное фото из жизни будущей Архангелогородчины 260 миллионов лет назад. К слову, именно растительноядные проколономорфы единственные из анапсид пережили Великое пермско-триасовое вымирание. Что-то скутозавровых размеров среди них уже не появлялось, но всё-таки и в триасе это были достаточно крупные животные.
Фауна суши пермского периода. Начало владычества синапсид
Пермский период (299 - 252 миллиона лет назад) был временем истинного владычества синапсидной ветви амниот. Их видовое разнообразие и общая численность достигала 70% от всех позвоночных суши, а в крупном размерном классе их преимущество виделось ещё большим. Появились синапсиды вместе со своими эволюционными конкурентами (диапсидами) ещё во второй половине предыдущего карбонового периода и вначале никаких особых эволюционных преимуществ не имели. Собственно, они и в начале пермского периода тоже были без особых преимуществ. У синапсид, если сравнивать с диапсидами, даже было множество примитивных черт, свойственных, скорее, амфибиям, а не амниотам, вроде влажной кожи, не очень хорошо переносящей высыхание и выделительной системы, требующей большого количества воды. Пермский же период, в отличии от того же карбонового, был временем весьма сухим. Казалось бы, диапсидам и все карты в руки! Но не тут-то было! Все относительно влажные, богатые растительностью и потенциальной добычей места были уже заняты синапсидами и оказалось, что их уже невозможно сковырнуть оттуда. В основном из-за четырёх причин. Во-первых, синапсиды первыми ещё в конце карбона вошли в крупный размерный класс. А крупный размерный класс - это такая штука, что не каждый с ним связываться будет. Правда, и пищи им требуется гораздо больше, но это уже другое дело.
Во-вторых, даже ранние базальные группы синапсид начали успешное преобразование зубов и челюстей. Сначала постоянное положение зубов обеспечило окклюзию, то есть точную подгонку друг к другу зубов верхней и нижней челюсти. Правда, зубик теперь ломать было чревато, но это помогло синапсидам сделать зубной аппарат режущего типа, который по сей день недоступен их диапсидным конкурентам. Затем наступила очередь дифференциации зубов. Появились режущие резцы спереди челюсти, заострённые и удлинённые клыки, предназначенные для более качественного умерщвления и тщательного разделывания добычи. Заклыковые зубы, правда, остались типичной для ранних амниот конической формы, но и они позже изменились. К слову, сначала синапсиды никак не могли договорится о количестве клыков. Их с каждой стороны каждой челюсти могло быть и два, и три. Лишь во второй половине периода был создан единый стандарт - по одному клыку с каждой стороны челюсти. А затем наступила очередь специальной жевательной мускулатуры. Да-да! Даже раннепермские синапсиды начали овладевать навыком предварительной обработки пищи - жеванию. Этим даже современные диапсиды не могут похвастаться. Лишь черепахи хоть как-то приблизились к тому, чтобы их челюсти стали выдавать что-то похожее на этот процесс.
В-третьих, синапсиды начали массово осваивать растительноядность, что для ранних амниот было не свойственно, а для амфибий вообще кажется дикостью. В фитофагстве синапсидам как раз и помогло совершенствование зубов и челюстей. Хотя потреблять растительность они начали даже раньше, чем зубы дифференцировали, да ещё и тушку начали отращивать приличных размеров, чтобы хищники не слишком зарились. Раннепермские эдафозавры вырастали до 3,5 метров и могли весить свыше 300 кг. Среднепермские казеиды были покороче, но куда массивнее. Об этих "товарищах", правда, разговор должен быть особым, так как весьма от многих достижений родичей они отказались (челюстно-зубной аппарат, зачатки терморегуляции и прочее), но о них как-нибудь потом. Главное, синапсиды выдали из своей среды растительноядных и, в том числе, крупных растительноядных животных. В этом с ними в пермском периоде могли спорить только растительноядные парарептилии - парейазавры.
В-четвёртых, даже раннепермские синапсиды задумались о принудительной терморегуляции своих организмов, что вовсе не было лишним в условиях не только сухого, но и весьма прохладного пермского климата. Ранним солнечным, но нежарким утречком куда приятнее быстрее перейти к активности, чем долгое время отогреваться на солнышке. Так и ты гарантированнее избежишь участи жертвы, да и самому напасть на сонную и непрогретую тушку будем намного приятнее и безопаснее. Раннепермские синапсиды придумали что-то вроде кожисто-скелетного паруса на спине, пронизанного кровеносными сосудами. На ночь он мог складываться (наверное!), а утром распрямлялся и начинал работать своего рода солнечной батареей. А во второй половине периода синапсиды смогли первыми из всех живых существ создать теплокровность. Но это уже будет другая "сказка".
Фауна суши пермского периода. Проблема примитивных пеликозавров
Пеликозавры - общее название для группы позднекарбоновых и раннепермских примитивных синапсид. Они все имели весьма ящерообразный облик и, в принципе, мало чем отличались от эволюционных конкурентов - диапсид. Основные отличия заключались всего в одном височном отверстии в черепе вместо двух и коже, лишённой чешуи и богатой различными железами. Только относительно поздние пеликозавры в лице эдафозавров и сфенакодонтов задумались о дифференциации зубов, совершенствовании челюстей, опорно-двигательного аппарата, а также о преимуществах теплокровности. К слову, от последних произошли более совершенные синапсиды - терапсиды, а, в итоге, и мы с вами. Некоторые учёные даже лишают самых примитивных пеликозавров (офиакодонтов, варанопсеид, эотиридид, казеид) правом называться синапсидами. Височное окно, конечно, одно, но у эвриапсид (например, плакодонтов) оно тоже одно, но эти эвриапсиды к синапсидам никаким боком не относятся. К тому же у примитивных пеликозавров височное отверстие расположено не совсем так, как у пеликозавров "истинных" (вышеупомянутых эдафозавров и сфенакодонтов), да и образовано разными частями одних и тех же костей. В общем, получившаяся группа офиакоморфов может быть в скором времени признана или сестринской остальным синапсидам, или вообще отнесена к родичам диапсид, потерявших одно из височных отверстий. Эти самые примитивные пеликозавры делятся на две ветви: офиакодонтид (включающие в себя ещё и варанопсеид) и казеозавров (эотиридиды и казеиды). Первые рискуют в ближайшее время перекочевать в кладу диапсид, так как практически уже доказана потеря ими второго височного отверстия, правда, диапсид весьма специфических, имеющих немалое сходство с синапсидами. Особенно это варанопсеид касается. Эти "зверушки" вообще ящерицы ящерицами, очень похожие на современных варанов (отсюда и название), только без чешуйчатой кожи (хотя у отдельных видов наблюдались остеодермы) и более массивного телосложения. Если не считать количества височных отверстий, то череп варанопсеид весьма напоминает череп ранних архозавров.
С остальными офиакодонтидами выходит поинтереснее. У самых крупных представителей группы - "зверушек" из рода офиакодонтов, на черепах ясно видны два височных отверстия. Причём у некоторых они "плавающие": слева могут располагаться два отверстия, а справа одно (или наоборот). То есть по черепу они непонятно кто, а по остальной анатомии и морфологии тоже, в принципе, непонятно кто. Типично рептильное строение тела соседствует с абсолютно синапсидной кожей. Диапсидные челюсти с диапсидной челюстной мускулатурой мирно уживаются с синапсидной дифференциацией зубов (клыки имеются, да и передние зубы вовсе не типично конические, а уплощённые типа резцов). Плюсом ко всему, по косвенным данным офиакодонты обладали весьма высоким для раннепермских животных суши метаболизмом, а значит приближались к настоящей теплокровности. Казеозавры распадались на две группы: эотиридид и казеид, причём первые почти наверняка были предками для вторых. Эотиридиды - это самые примитивные из самых примитивных синапсид, хотя и являются вовсе не базальной, а одной из сравнительно поздних групп "примитивных" пеликозавров. Это были мелкие невзрачные насекомоядные "ящерки", то есть типичные ранние амниоты, но возникшие и развивающиеся не в карбоне, а в ранней перми. От них произошли казеиды - несуразные обликом крупные фитофаги. Облик у них действительно был несуразный: очень маленькая голова по сравнению с туловищем, бочкообразное тело, относительно короткие и слабые "рептильно" расположенные лапы. Интересно, но казеиды - единственные "примитивные" пеликозавры, которые пережили "Олсоново" вымирание на границе ранней и средней перми. Более того, они вполне успешно пережили и "настоящих" пеликозавров. Вот только радовались они недолго. Средняя и поздняя пермь стали эпохой подвижных и весьма высокоразвитых для палеозоя терапсид. Казеиды недолго им сопротивлялись.
Фауна суши пермского периода. "Настоящие" пеликозавры
Одновременно с "примитивными" пеликозаврами жили и пеликозавры весьма продвинутые. Давайте условно назовём их "настоящими". Почему "настоящими"? Да просто потому, что именно при виде эдафозавра или диметродона человек, знакомый с пеликозаврами только по детским энциклопедиям и учебнику биологии воскликнет: "Так вот же он, пеликозавр!" Чем пеликозавры массовой культуре известны? Конечно же, своими роскошными спинными парусами, раскрывающимися во всю красоту прохладным пермским утром. Таким украшением могли похвастаться представители следующих групп ранних синапсид: эдафозавриды и сфенакодонтиды (последние далеко не все). Эдафозавриды - это среднего и весьма крупного (для пермского периода) размера растительноядные синапсиды. В палеонтологической летописи впервые появляются в конце каменноугольного периода, а в начале пермского составляют основную массу консументов первого порядка (растительноядных) на суше. А масса действительно была немалой. Типичный представитель группы - проживающий на севере Пангеи эдафозавр, достигал 3,5 метров в длину и мог весить до 600 килограмм. Эдафозавриды обладали плотным телосложением, короткими лапами, расположенными по-рептильному по бокам от туловища. Их пасть была зубастой, но зубы были небольшими и не прослеживалось никаких следов окклюзии и дифференциации. Растительную свою пищу они не пережёвывали, а отрезали и проглатывали, хотя уже сумели создать мягкие щёки для её удержания в ротовой полости. Украшением как мелких, так и крупных эдафозаврид был спинной скелетно-кожистый парус. Для чего он был нужен (вторичный половой признак или средство принудительной терморегуляции), споры идут до сих пор. Но, скорее всего, верны оба мнения. Парус помогал и представителей противоположенного пола привлечь, и (благодаря многочисленным кровеносным сосудам, пронизывающим парус) побыстрее согреться прохладным утречком. Эдафозавриды вымирают в конце первой трети пермского периода. Вымирают неожиданно, так как были достаточно успешной группой животных. Не менее неожиданно в их экологической нише (крупных фитофагов) эдафозавров сменяют куда более примитивные казеиды. Но и те вскоре проигрывают эволюционную гонку парарептилям-парейазаврам - представителям ещё более примитивной ветви амниот.
Со сфенакодонтидами всё намного сложнее. Дело в том, что все последующие синапсидные ветви эволюционно идут именно от них. То есть, с точки зрения кладистической систематики даже мы с вами до сих пор являемся сфенакодонтидами. Всё развесистое древо позднепермских и триасовых немаммальных синапсид, позднетриасовых, юрских, меловых и кайнозойских синапсид маммальных вышло из позднекарбоновых сфенакодонтов. Именно эти "зверюги" со временем превратились в настоящих зверей. Ранние сфенокодонтиды ещё были полурептилиями с их специфической походкой "вразвалку", с одинаковыми коническими зубами, доставшимися ещё от полуамфибийных предков, практически амфибийной влажной кожей. В общем, не пойми чем, способном выжить только в относительно тёплом и влажном климате карбоновых болот. Пермские сфенакодонты уже значительно эволюционно "прокачались". Их челюсти и зубы начали преобразовываться. Сначала зубы получили окклюзию (смыкание зубных рядов и постоянное их положение в челюсти). Затем эти зубы начали дифференцироваться, то есть делиться на режущие и откусывающие что-то мягкое резцы, убивающие и разделывающие на удобные куски клыки, перетирающие или разрезающие что-то окончательно моляры. В принципе, перетирать что-то сфенакодонтам с дифференцированными зубами было особо нечего. Им намного важнее были зубы "хищников": убивающие, откусывающие и разделывающие. И именно такие зубы и приобрели сфенакодонты ранней перми, так как все они были без исключения хищниками (пусть некоторые и охотились только на насекомых). Но это уже судьба всего нашего выжившего синапсидного рода. Все мы изначательно были хищниками. Хищниками были породившие нас сфенакодонты. Хищниками (пусть мелкими и охотившимися на насекомых) были первые триасовые "млеки". Хищниками были даже предки современных "мирных" копытных. А уж хищники из "настоящих" пеликозавров перми вышли на загляденье! Диметродон достигал длины в 4 метра и весил около 200-300 килограмм, то есть был длинным, но стройным и стремительным хищником. Стремительность ему придавал спинной парус, идентичный такому у эдафозавров (у ранних сфенакодонтов "парусов" не было). Пронизанный кровеносными сосудами парус позволял диметродону намного быстрее преодолевать ночное оцепенение, естественное для холоднокровных животных пермского периода. Что поделать, прохладненько было тогда на севере Пангеи, где и обитали диметродоны и подобные им "парусные" "ящеры"! Пронизанный многочисленными кровеносными сосудами парус намного быстрее прогревался поднимающимся солнышком. Что и позволяло разным там диметродонам успешно охотиться на не успевших прогреться эволюционных конкурентов. В принципе, сильное похолодание первой трети пермского периода заставило многих сфенакодонтов задуматься о настоящей терморегуляции. Её реализовали непосредственные потомки сфенакодонтов - териодонты. Именно они первыми начали создавать термоизолирующие покровы и совершенствовать повышенный метаболизм (и, соответственно, температуру тела). Начали они свои эксперименты около 265 миллионов лет назад, а спустя ещё 7 миллионов лет грянуло очередное вымирание, которое на суше в основном затронуло именно её синапсидное население.
Олсоново вымирание: смена синапсидной фауны
Олсоново вымирание названо в честь американского учёного Эверетта Олсона, который не только заметил пропасть между фаунами ранней и поздней перми (замечали и другие и неоднократно), но и сумел эту пропасть научно обосновать. Вымирание это малоизвестно. Оно практически не знакомо любителям эволюционной истории, да и учёные часто обходят его вниманием. Хотя с точки зрения влияния на дальнейшую эволюцию животного и растительного мира, это вымирание мало чем уступает куда более известным пяти "Великим вымираниям" (ордовикско-силурийское, позднедевонское, пермско-триасовое, позднетриасовое, и мел-палеогеновое). Вымирание это случилось около 273 миллионов лет назад и по традиции всех массовых вымираний затронуло в первую очередь морскую фауну. Оно достаточно частым гребешком причесало разнообразие ракообразных, моллюсков, брахиопод. Рыбы же затеяли во время этого вымирания целую карусель. Они вымирали целыми семействами и даже отрядами, но на их смену эволюция выдавала новые семейства и отряды. Так что биоразнообразие рыб даже увеличилось после данного вымирания. Правда, стоит отметить, что разнообразие хрящевых рыб уменьшилось и всё большую роль в морских биоценозах стали играть рыбы лучепёрые. Гораздо больше натворило Олсоново вымирание на суше. Первым делом оно очень больно ударило по флоре суши. После него споровые растения окончательно уступают лидерство растениям семенным. Гигантские папоротники и хвощи предыдущих эпох, и так изрядно прореженные предыдущими неудачами (вроде Великого кризиса карбоновых лесов и всеобщего иссушения климата в начале пермского периода) начинают стремительно мельчать и уходить на побережья крупных рек и в другие подобные влажные зоны. Все же остальные доступные для растений пространства Пангеи заняли родичи и предки современных Саговниковых и Хвойных. Фауну суши Олсоново вымирание затронуло на удивление мало. Членистоногие суши, а также амфибиии и диапсидные амниоты до и после вымирания практически не отличались. Не изменилось видовое разнообразие, практически не снизилась общая численность. Зато очень резко изменился видовой состав синапсидной составляющей сухопутных биот. "Опаруснённые" эдафозавры (растительноядные) и поздние сфенакодонты (хищные) не имели соперников в ранней перми и ничего не предвещало их вымирания. Тем не менее, после Олсонового вымирания "парусные" звероящеры полностью пропадают из палеонтологической истории. Им на смену приходят эволюционные потомки сфенакодонтов - терапсиды. Терапсиды - это уже весьма продвинутые синапсиды. Во всех их группах (биармозухии, дейноцефалы, горгонопсы, тероцефалы, цинодонты) начали проявляться черты нынешних млекопитающих. Это дифференцированная зубная система. Мощные челюстные мышцы, позволяющие совершать жевательные движения. Выпрямленные под туловищем, а не "рептильные" задние конечности (до выпрямленных передних эволюция ещё не доросла). "Истинная" теплокровность, обеспеченная метаболизмом, а не внешними приспособлениями или большой тушкой. Ну и появляющиеся у поздних представителей терапсид теплоизолирующие покровы в виде шерсти.
Фауна суши пермского периода. Ранние терапсиды
Олсоново вымирание середины пермского периода окончательно разделило эволюционную историю синапсид на "до" и "после". "До" - примитивные пеликозавры, "после" - уже достаточно продвинутые терапсиды. Терапсиды не возникли ниоткуда. Это эволюционные потомки одной из пеликозавровых ветвей - сфенакодонтов. В любом случае, они очень быстро сменили на просторах Пангеи своих предков. От Олсонова вымирания до Великого пермско-триасового терапсиды набирали всё больше и больше весьма прогрессивных для пермского периода признаков. Каких же? Уже ранние терапсиды щеголяли полностью дифференцированным зубным аппаратом. Зубы терапсид из почти одинаковых "колышек" пеликозавров превратились в отрезающие резцы, разрывающие клыки (которых наконец-то стало по два в каждой челюсти) и перемалывающие моляры. Терапсиды стремительно теряли ящерицеобразный облик своих предков. Задние конечности очень сильно изменились анатомически. Вывернутый вбок коленный сустав переместился вперёд, изменилось строение тазобедренного сустава, из-за чего задние конечности терапсид заняли не "рептильное" положение по бокам от туловища, а "переехали" под него. Передние конечности тоже изменили своё строение ("ушёл" назад локоть, изменился плечевой сустав), но всё-таки оставались несколько врастопырку.
Сильно прогрессировали органы чувств. Практически глухие синапсиды карбона и ранней перми получили-таки органы слуха. Терапсиды сумели преобразовать в них несколько "лишних" костей нижней челюсти. Сильно прогрессировало и осязание. Чувствительная "мокрая" кожа синапсид и так этому способствовала, а тут ещё появились и чувствительные волоски - вибриссы. К слову, скорее всего, именно вибриссы в дальнейшем сделали наших предков пушистыми, перейдя с мордочки на всё остальное тело. И да, поздние терапсиды действительно отрастили у себя шерсть, которая перешла по наследству их потомкам - млекопитающим. А вместе с шерстью, вернее, ещё задолго до неё, терапсиды смогли "прокачать" у себя метаболизм. Они смогли развить у себя настоящую теплокровность, свойственную сейчас только млекопитающим и птицам. Делились терапсиды на четыре основных ветви: биармозухии, дейноцефалы, аномодонты и териодонты. Первые были базальными терапсидами, причём не очень-то и распространёнными. Останков их найдено немного, большинство видов представлены всего одним экземпляром весьма неполного скелета. Были биармозухии ("крокодилы из Биармии") небольших и средних размеров хищниками. От остальных терапсид отличались примитивностью скелета, хотя определённые подвижки по преодолению его "рептильности" у них были. Наиболее типичным (а также самым крупным и самым распространённым) представителем группы был среднепермский биармозух, живущий около 265 миллионов лет назад на территории современного Пермского края. Биармозухии не выдержали конкуренции со стороны других терапсид и вымерли задолго до конца пермского периода.
Дейноцефалы (или диноцефалы) ("ужасноголовые") - ещё одна ветвь примитивных среднепермских терапсид. Их останки весьма распространены в пермских отложениях Южной Африки, европейской части России и Китая. Изначально они были всеядными (более мелкие виды) и хищными (виды более крупными. К слову, они (антеозавриды) хоть и возникли раньше, но оказались более успешными хотя бы в том плане, что вымерли гораздо позже остальных дейноцефалов, уже в результате Великого вымирание. Типичными представителями антеозаврид был род антеозавров - самых крупных представителей ранних дейноцефалов. Антеозавры были хищниками, причём их вполне можно было назвать самыми крупными хищниками пермского периода. Их размеры (до 6 м длины и 600-800 кг массы) превосходили даже самых известных хищников периода - горгонопсид. Более поздние дейноцефалы отказались от полноценного хищничества. Тапиноцефалы (так они назывались!) были всеядными (те, кто небольшие) и растительноядными (те, кто крупнее). Среди последних наиболее известен мосхопс. Эта "зверюга" достигала 3-5 м в длину и могла весить больше полутонны. Все дейноцефалы были клыкастыми (даже растительноядные), с полувыпрямленными задними конечностями, но ещё глуховатыми и холоднокровными. Все дейноцефалы (кроме антеозавров) не смогли выдержать конкуренции с остальными терапсидами и вымерли в конце средней перми.
Значительно более долгую эволюционную историю продемонстрировали представители третьей группы терапсид - аномодонты ("неправильнозубые"). Появились они в средней перми и просуществовали до позднего триаса и даже ранней юры, достаточно успешно пережив Великое пермско-триасовое вымирание. Неправильнозубыми их назвали из-за того, что часть типичных для терапсид зубов была утрачена ими в результате эволюции. Ранние аномодонты (веньюковиодии и дромазавры) были мелкими всеядными видами. Более поздние дали самое большое разнообразие среди всех синапсид пермского периода. Ими стали дицинодонты ("двусобакозубые") - самые успешные терапсиды из тех, что не стали нашими непосредственными предками. Дицинодонты - это очень и очень разнообразная группа. Они включали мелких всеядных животных размеров с кошку, которые стремительно осваивали самые разнообразные экологические ниши. Таким, к примеру, был позднепермский кистецефал, который был роющим животным, пермским аналогом современного крота. Более крупные дицинодонты предпочитали растительноядность, хотя и среди них попадались всеядные. Интересным фактом является то, что среди дицинодонтов нередко встречались виды, у которых имелись ядовитые железы и протоки, ведущие от них к зубам. Крупные растительноядные дицинодонты весьма успешно пережили пермско-триасовое вымирание. Причём часть видов сумели преодолеть ещё и вымирание в конце триаса. Последние дицинодонты доживали свой век на территории будущей Европы уже в начале юрского периода. К числу таких поздних успешных видов относится, например, лисовиция, которая проживала на территории будущей Польши в самом конце периода триасового. Лисовиция стала самой крупной неммамальной (не относящейся к млекопитающим) синапсидой за всю историю планеты. Достигала эта почти зверюшка размеров хорошего африканского слона и обладала всеми признаками поздних дицинодонтов (бивнями вместо клыков, ядовитыми железами, крупными размерами и типичным фитофагством).
Фауна суши пермского периода. Зверозубы
Зверозубые ящеры - так совсем недавно называли прогрессивных синапсид второй половины пермского периода. Зверозубыми они несомненно были, их зубы, как и у современных млекопитающих, подразделялись на резцы, клыки и коренные, но вот ящерами точно нет. Пути настоящих ящеров-рептилий и зверозубов разошлись ещё в карбоновом периоде. С млекопитающими зверозубов-териодонтов роднила не только схожая зубная система, но и строение черепа, позвоночника и конечностей, теплокровность и даже пушистость у позднепермских зверозубых. Такая схожесть неудивительна: современные млекопитающие являются прямыми потомками териодонтов пермского периода, вернее одной из их ветвей - цинодонтов. С остальными терапсидами териодонты находились во вполне близких родственных отношений. Аномодонты ("неправильнозубые") являлись их ближайшими родичами, относясь к одной кладе Неотерапсид. Двоюродными братьями зверозубов были диноцефалы, а троюродными - биармозухии. Но на фоне родственников териодонты выделялись целой кучей прогрессивных для палеозоя адаптаций. Что поделать, планета стремилась в мезозой, жизнь ускорялась и зубастые владыки пермского периода находились впереди этого ускорения.
Среди териодонтов выделяется три основные эволюционные группы. Самыми примитивными из продвинутых были горгонопсиды. Но это на фоне остальных териодонтов они примитивными были. А так для поздней перми очень даже впечатляющий набор качеств был, особенно в плане скелета. Задние конечности горгонопсид уже были полностью выпрямлены под туловищем, при передвижении вполне могли выпрямляться и передние. По всем собранным данным эти "зверушки" (почти!) стали первыми хищниками в истории планеты, которые были способны к быстрому (правда, недолгому) бегу рысью или иноходью. А хищниками они были полными, все группы горгонопсид просто презирали фитофагство. Мало того, хищниками они были доминирующими. Мало кто мог в пермском периоде оказать им конкуренцию в плане добычи, умерщвления и разделке себе подобных. Быстрые, координированные (на что указывает размер мозжечка, превышающего объёмами весь остальной мозг), с внушительными клыками, далеко и угрожающе торчащими из пасти, они были опаснейшими хищниками, которые безо всякого страха атаковали добычу, крупнее их самих. Впрочем, чувство страха вообще пермским синапсидам, да и всем прочим позвоночным периода не было свойственно из-за некоторой умственной слабости (ну туповатыми они были, простите!).
Самыми крупными представителями группы были наши "соотечественницы" - иностранцевии. "Зверюга" достигала 3,5-5 метров в длину и 300-400 килограмм массы. По ряду отдельных находок в Архангельской области и Южном Урале можно предположить существование и более крупных экземпляров. Иностранцевии были высокоспециализированными хищниками, занимавшими экологическую нишу своих двоюродных правнуков - саблезубых кошек. Да, первыми саблезубыми стали именно они! Причём, строение черепа, челюстей и самих сабельных клыков подразумевало их более эффективное использование, чем у потомков. К слову, "зверюга" эта одна из моих любимых и недаром красуется на логотипе канала. Жаль, но все горгонопсиды вымерли в результате Великого вымирания. Второй группой териодонтов были тероцефалы ("звероголовые"). Когда-то рассматривались как предки цинодонтов, а то и вовсе млекопитающих. Позднейшие исследования показали, что цинодонтам они являются сестринской группой, а к млекопитающим не имеют никакого отношения. Ну уж очень привлекательной выглядела версия! Ведь даже наличие шерстяного покрова у тероцефалов было установлено раньше, чем у цинодонтов, да и внешне тероцефалы весьма и весьма напоминали крысоподобных млекопитающих юрского периода. Вот только эти "крысы" были побольше размером (до 2 м длиной), более зубастые, а многие ещё и ядовитые. Крупные виды не пережили Великое вымирание, но мелкие вполне успешно перешли в триасовый период. А вот уже там не выдержали конкуренции со своими ближайшими родичами - цинодонтами ("собакозубыми"). Последние тероцефалы вымирают ближе к середине триаса. Почти все виды тероцефалов были или всеядными, или насекомоядными, или мелкими хищниками. В конце пермского периода составляли по количеству особей абсолютное большинство среди мелких синапсид, превосходя даже не раз уже упомянутых цинодонтов.
Фауна суши пермского периода. Цинодонты
Цинодонты - это самая прогрессивная группа пермских терапсид, по многим признакам сильно сближающиеся с современными млекопитающими. Мало того, они является их непосредственными предками. По сути, если исходить из родственно-генетических связей, то все ныне живущие млекопитающие - это и есть выжившие цинодонты. Так что правильнее будет не противопоставлять пермских и современных "пушистых", а говорить о немаммальных и маммальных цинодонтах (выкармливание детёнышей молоком появилось уже в триасе). Пермские цинодонты - это весьма разнообразная группа, включающая как хищные, так и всеядные и растительноядные виды. Были они подвижными, с куда более прогрессивным скелетом, чем горгонопсиды или даже ближайшие родичи тероцефалы. Были они теплокровными. Были они с уже хорошо сформировавшейся меховой шубкой. Да и зубки были уже полностью идентичными современным зверям. Но это были преимущественно небольшие животные (до 1-1,5 м в длину и небольшой массы), так что особо и не могли претендовать на какие-то значимые экологические ниши. Им оставались роли небольших ночных хищников, всеядных животных, да растительноядных типа грызунов.
По факту, цинодонты находились в эволюционной тени грозных горгонопсид, более крупных, хотя и похожих на цинодонтов, тероцефалов (эти ещё и ядовитыми были!) и крупных парарептилий. Только после Великого вымирания цинодонты начали крупнеть и бороться за что-то достойное. Тоже самое, в принципе, произошло и с потомками цинодонтов - "настоящими" млекопитающими в мезозойскую эру. Они оказались в тени архозавровых потомков - динозавров и так и не смогли выбраться из малого размерного класса вплоть до палеогена. Почему же так произошло? Почему эволюционно продвинутые и прогрессивные цинодонты оказались первоначально на экологических задворках? Многие учёные обвиняют в этом теплокровность цинодонтов, хотя в той же теплокровности небезосновательно подозревают и тероцефалов, и горгонопсид, и даже поздних сфенакодонтов. В принципе, логично! При "настоящей" теплокровности растительноядным нет нужды отращивать многокилограммовую тушку, чтобы поддерживать жизнь желудочно-кишечной микрофлоры, без которой невозможно полноценное переваривание грубой и малопитательной растительной пищи. Теплокровные хищники открывают для себя новую экологическую нишу ночных охотников, для которой необязательны большие размеры, а важны органы чувств и подвижность, с чем у цинодонтов был полный порядок. Они даже слух смогли "прокачать", что было просто супер-достижением для пермского периода, когда большинство амниот были практически глухими.
Пермские цинодонты обладали почти всеми признаками млекопитающих, но именно "почти". Они откладывали яйца и не выкармливали детёнышей молоком, хотя их потовые железы уже начали преобразовываться в молочные. Больше всего цинодонты напоминали современных яйцекладущих первозверей - утконосов и ехидн. Один из самых ранних цинодонтов - двиния, живущая 259-252 миллиона лет назад, вообще внешне утконос утконосом только без утконосьего клюва. Двиния является одним из видов базальных цинодонтов, у которых ещё достаточно много черт, объединяющих их с тероцефалами (например, удлинённый череп). Стоит, правда, отметить, что двинии точно не имеют отношения к возникновению млекопитающих. Северопангейские цинодонты (к которым и относились двинии, обитающие тогда на территории современной Архангельской области) вымирают в результате пермско-триасового вымирания. Жизнь млекопитающим дали цинодонты с юга Пангеи. Базальной формой для них являлись ровесники двиний - южноафриканские харассогнатусы, обладающие тем же набором тероцефальных признаков. Они уходят в мир иной, но успевают дать начало двум линиям цинодонтов самого конца пермского периода: эпицинодонтов и эуцинодонтов. Одна из линий последних и привела в итоге к "настоящим" млекопитающим. Но это уже "сказка" из триасового, а не пермского периода.
Фауна суши пермского периода. Диапсиды
Диапсиды в пермском периоде отдыхали. Они никуда не торопились в эволюционной гонке. Они не лезли в крупный размерный класс (хотя, кто бы их тогда туда пустил?). Они не выдвигали каких-то передовых эволюционных решений, хотя кое-что интересное перед самым Великим вымиранием придумали. Они тихо и мирно существовали где-то на задворках пермских биоценозов, кошмаря только насекомых, да едва вылупившуюся молодь парарептилий и синапсид (ничего, кстати, не напоминает?). Это были мелкие, ящеркоподобные существа, большую часть периода проживающие в самых сухих и неуютных регионах Пангеи. Про пермских диапсид вообще можно было бы не писать отдельную главу, если бы не один момент. В конце пермского периода с ними происходило то же самое, что и с млекопитающими конца периода мелового. Они внезапно стали очень разнообразными, многочисленными и если и не доминировали в малом размерном классе (там им весьма мешали цинодонты), то были весьма и весьма заметны. Диапсиды будто предчувствовали (как и млеки где-то 70 миллионов лет назад), что впереди их время. Последняя четверть пермского периода (265-252 миллиона лет назад) вообще стала знаковым временем для диасид. Сначала они разделились на две своих главных эволюционных ветви: архозавроморфов и лепидозароморфов. Первые ближе к концу периода породили уже настоящих архозавров. Правда это были ещё не те предки крокодилов и динозавров, которые нам известны по триасовому периоду. Они были поменьше, не такими подвижными, ещё не изобрели бипедальность, хотя уже вставали на задние конечности, задумчиво нюхая воздух. Их время ещё не пришло. Оно придёт после Великого вымирания. Лепидозавроморфы в конце пермского периода удивляли больше. Они, к примеру, выдвинули из своей среды вейгельтизаврид - одних из самых первых покорителей воздуха. Это в триасе летающими (вернее, планирующими) ящерицами никого удивить было нельзя, а для пермского периода зрелище было весьма захватывающим. Наверное, все окружающие горгонопсы с цинодонтами сбегались посмотреть. А ещё где-то в самом конце пермского периода прячутся полуводные предки ихтиозавров - рыбовидных ящеров мезозоя. Уж слишком быстро с точки зрения эволюции они стали рыбовидными. Были ли они лепидозавроморфами, архозавроморфами или вообще невиданными "зверушками, сказать нельзя, но искать их надо именно на побережьях Пангеи.
Триас: палеогеография, климат, условия жизни
Триасовый период или триас - первый период мезозойской эры (эры "средней жизни"). Он начался 252 миллиона лет назад и закончился 201 миллион лет назад. Период уникальный. Чем, спросите вы? Он единственный обрамлён с обеих сторон крупными вымираниями. Начался с пермско-триасового Великого вымирания, которое отправило в мир иной 96% морских и 73% сухопутных видов. Закончился триасово-юрским или позднетриасовым вымиранием, которое было поскромнее, но тоже изрядно проредило морские и сухопутные биоты. Первое дало шанс диапсидам, которые до этого прозябали под пятой звероящеров, второе позволило динозаврам выйти из тени своих эволюционных конкурентов. Во время триасового периода почти вся суша планеты была сосредоточена в огромном массиве - супер-континенте Пангея. Своей формой он напоминал букву "С", которая своей спинкой была обращена к предку современного Тихого океана - Панталассе. Рожки этой огромной буквы составляли современные Северный Китай (с севера) и Австралия (с юга). Между рожками располагались два океана сильно помельче: Палео-Тетис и Нео-Тетис (или просто Тетис). Друг от друга они были отделены целой цепью микро-континентов, которая состояла из будущего Южного Китая и цепочки так называемых Киммерийских тиррейнов (сейчас это практически весь юг Евразии от Турции до Таиланда за исключением полуострова Индостан). Когда-то эти кусочки суши сбежали от южной Гондваны на север. Бежали достаточно быстро, уменьшая перед собой Палео-Тетис и способствуя расширению за собой Нео-Тетиса. В итоге Палео-Тетис канул в Лету. Мы сейчас не сможем обнаружить даже малейших его кусочков. А вот Нео-Тетис (вернее, его жалкие остатки) дотянул даже до наших дней. Это современные Средиземное, Чёрное и Каспийское моря. Правда, стоит сказать, что дальнейшие передвижения тектонических плит сравнительно скоро "прикончат" и эти остатки. Средиземному морю осталось жить миллионов 30 лет. Остальные протянут немногим больше. Ранний триас - это одно из самых тёплых времён фанерозоя. Среднепланетная температура могла подскакивать до 27-29 градусов, а уж близкие к экватору внутриконтинентальные области Пангеи и вовсе напоминали сухой раскалённый ад. Потом похолодало. Причём похолодало так, что в самых южных областях Пангеи (современная Бразилия) даже ледники возникали. До современных показателей эти похолодания, правда, не дотягивали. Наша эпоха так называемого "глобального потепления" не может среднепланетную температуру даже до 15 градусов довести. Самые жёсткие похолодания триаса опускали её минимум до 18 градусов (напоминаю, что это в среднем). Ближе к концу периода снова начало теплеть и ледяные шапки Амазонии растаяли. Судя по всему лишь только крайне северные и крайне южные области Пангеи, а также приморские и приречные её области были оптимальны для сухопутной жизни. Центральная часть супер-континента (и в северном, а особенно в южном полушарии) представляла собой сухую безжизненную опалённую Солнцем пустыню. Зато в относительно влажных областях всё было практически идеально. Уровень углекислого газа в атмосфере значительно возрос по сравнению с пермским периодом, чем с удовольствием пользовались растения (для них СО2 - это просто источник питания). Уровень углекислоты атмосфере в триасе составлял более 1% процента в начале периода (сейчас 0,03%) и около 0,7% в его конце. Нынешним человекам пришлось бы трудненько без кислородной маски, зато растения с гораздо большей скоростью, чем в пермском периоде, бросились осваивать внутриконтинентальные зоны. А вот уровень кислорода в атмосфере подкачал. Если в предыдущем пермском периоде он достигал современных значений (20,9%) и даже их превышал, то в триасовом он весьма сильно упал. В начале периода он был чуть выше 16%, а в его конце едва достиг 18. Как итог, в эволюционной борьбе в триасе победили те виды, которые более эффективно потребляли кислород. В общем, начался закат эры синапсид.
Морская фауна триаса
Печальное зрелище представляли собой моря самого начала триасового периода около 251 миллиона лет назад. Их буквально метлой вымело от всего живого случившееся совсем недавно Великое вымирание. До 96% всех морских видов животных отправилось в небытие. Для восстановления морским биоценозам понадобилось 5-10 миллионов лет, но моря уже так и не стали прежними. Палеозой ушёл в прошлое. Мезозойская эра предъявляла уже другие требования к живым организмам. Про медлительность и надежды на защищённость можно было забыть, особенно после того, как в моря вторглись изголодавшиеся на суше рептилии-диапсиды. На первый план теперь выходили скорость, незаметность и зубастость вкупе с крупными (или, напротив, крайне маленькими) размерами. Но это уж кому как повезёт. У разных групп приспособления были свои. В общем, можно сказать, что морские биоценозы триаса выглядели куда более приближенными к современным, чем пермские. Трилобиты вымерли окончательно и безвозвратно, уступив своё место и дав возможность эволюционировать высшим ракам. Именно тогда криль стал господствующим крупным зоопланктоном, оставаясь им до сих пор. Брахиоподы смирились с невозможностью конкурировать с двустворчатыми моллюсками и отошли на второй план в сообществах донных фильтраторов. Двустворчатые же моллюски в триасе приобрели массу полезных функций, вроде умения намертво прикрепляться к твёрдому субстрату. Именно тогда появляются любимые ныне людьми устрицы и мидии.
Головоногие моллюски после шока Великого вымирания начинают переживать новый расцвет в середине триасового периода. Они становятся настолько многочисленными и разнообразными, что их окаменевшие раковины служат индикаторами морских донных отложений мезозойской эры. В триасе они, правда, начинали с небыстрых наутилоидей, уцелевших после пермско-триасового вымирания. Но уже к концу периода (под давлением морских рептилий) они сменились стремительными белемнитами (предками современных каракатиц и кальмаров) и небыстрыми же, но весьма крупными и сильно защищёнными своей закрученной раковиной аммонитами. Из остальных беспозвоночных больше всего в триасе подсуетились иглокожие, выдав из своей среды первых настоящих морских ежей, успешно доживших до наших дней. Рыбы потерпели меньше урона во времена Великого вымирания, чем беспозвоночные, но и "рыбье царство" стремительно менялось. Вымерли все представители устаревших эволюционно классов, вроде конодонтов, а значение хрящевых рыб значительно упало. Они вообще до кайнозоя оказались на третьих-четвёртых ролях в морских биоценозах, будучи оттеснёнными на дно, в мелководья и в речные эстуарии и дельты. На первые роли среди рыб вышли рыбы лучепёрые. Причём и среди них происходили значительные изменения. Хрящевые ганоиды сначала уступают главную роль ганоидам костным, а в середине триаса и те, и другие уступили первенство костистым рыбам. Данные рыбы и ныне являются самыми многочисленными и разнообразными не только среди рыб, но и среди всех позвоночных. Если говорить совсем просто, то в триасовых морях "осётров" начали стремительно сменять "окуни".
Самым же значительным событием триаса применительно к морской фауне стало вторжение в неё с суши. В моря пришли три (а, если честно, то, скорее всего четыре или пять) линии амниот, которые именно в триасе решили стать морскими животными. В пермском периоде таких поползновений не возникало. Этими линиями стали стали эвриапсиды (ихтеоптеригии), завроптеригии и ихтиозавры. К первым в своё время скопом отнесли всех вторичноводных амниот триаса, так как у всех было весьма примечательное строение черепа. Височное окно, по наличию и количеству которых дифференцируют все группы амниот, у них было всего одно, но образованное совсем другими костями, чем у синапсид, и в несколько другом месте. Было время, когда эвриапсид считали 4-й ветвью амниот наряду с анапсидами, синапсидами и диапсидами, но позднейшие исследования показали, что они всё-таки являются (скорее всего, но не факт!) диапсидами с редуцированными нижними височными окнами. Возможно, что такое строение черепа было продиктовано водным образом жизни. Сейчас к "чистым" эвриапсидам относят только две группы морских амниот триаса: киамодонтоиды и плакодонтоиды. Что те, что другие существовали только в триасе, вымерев в результате поздне-триасового вымирания. Первые очень напоминали морских черепах с не до конца сформировавшимся панцирем, а вторые - крупных ящериц, у которых конечности уже смогли преобразоваться в ласты. От какой группы наземных амниот они происходили, неизвестно до сих пор. Одни исследователи относят эвриапсид к лепидозавроморфам, другие - к архозавроморфам, третьи признают их "особость" и даже происхождение от какой-то "левой" группы амниот, которые даже завропсидами не являются.
Завроптеригии в триасовом периоде вовсе не были на первых ролях в морских биоценозах. Они (в лице нотозавров) только пытались их осваивать. Во второй половине триаса они уже выдали группу плезиозаврид, которые более или менее успешно просуществовали до конца мезозойской эры. Это были длинношеие плезиозавры и короткошеие плиозавры - ящеры с гребными конечностями - ластами. Самые крупные представители группы (эласмозавры) могли вырастать до 20 метров в длину и весить 8-10 тонн. Но в триасовом периоде что нотозавры, что плезиозавриды находились в тени истинных владык триасовых морей - ихтиозавров. Происхождение ихтиозавров до сих пор неясно и непонятно. По строению черепа они истинные эвриапсиды, но никаких доказательств их родства с, к примеру, плакодонтами нет. Нет никаких доказательств и свидетельств их родства с любыми другими группами амниот перми и триаса. Сейчас их пытаются привязать к лепидозавроморфам (современные змеи и ящерицы), к архозавроморфам (современные крокодилы и птицы и множество вымерших форм), а то и вовсе к диапсидам и даже завропсидам не относят. Есть предположение, что ихтиозавры произошли от какой-то неизвестной группы пермских амниот, которые не являлись ни синапсидами, ни диапсидами. Они (их останки) таились где-то в глубинах пермских отложений. А как только в результате Великого вымирания освободились куча экологических ниш, предки ихтиозавров рванули на завоевание моря.
Самая главная загадка ихтиозавров состоит в том, что их наземные и полуводные предки неизвестны совсем. Будто бы их и не было. Создаётся впечатление, что ихтиозавры так и появились в самом начале триаса полностью приспособленными для водного образа жизни. А были ихтиозавры чрезвычайно рыбообразными. Конечности стали плавниками, вырос двулопастный вертикальный "рыбий" хвост, у большинства видов появился спинной плавник. Ихтиозавры были активными охотниками на рыбу и головоногих моллюсков. Их активности помогала теплокровность и живорождение (что, собственно, свойственно было для всех морских ящеров).
Триас. Флора Пангеи
Растения не так сильно как животные пострадали в результате Великого вымирания, разделившего пермский и триасовый периоды, палеозойскую и мезозойскую эры. Тем не менее, и им пришлось нелегко. Следы грандиозных пожаров обнаруживаются на границе периодов и эр. Скорее всего, множество растений ими было уничтожено. Но они сумели возродиться из пепла и видовое разнообразие просело несильно (опять-таки, если с животными сравнивать). Самой, пожалуй, большой потерей стало вымирание глоссоптерид - семенных растений различных жизненных форм (от травянистых до древесных) и неясной систематики (то ли семенные папоротники, то ли уже "настоящие" семенные). В пермском периоде именно они были знаковыми для всей южной (гондванской) части Пангеи. И если видовое разнообразие было в основном сохранено, то вот с ареалом распространения и общей биомассой были проблемы. Хотя, казалось бы, растениям все карты шли в руки. Начало триаса стало одной из самых тёплых эпох за всю историю планеты. В атмосфере было полно углекислоты. То есть тепло есть, еда есть. Что же ещё растениям не хватало? Да воды не хватало, без которой и обилие углекислого газа в "рот" не полезет! Триас был не только тёплым (скорее, жарким) периодом, но ещё и очень сухим. Внутриконтинентальные области Пангеи представляли собой выжженную солнцем пустыню. Растительный мир жался к немногим источникам пресной воды. А их действительно было немного.
Полегче (влажнее) стало в середине периода, когда "треснул мир напополам", то есть начался распад Пангеи. И это стало поворотным событием для пангейской флоры. До середины триаса она фактически повторяла пермскую. Да, менее богатую, с суженными ареалами распространения, но по факту растения были одними и теми же. По всей Пангее росли уцелевшие после Великого кризиса карбоновых лесов лепидофиты (правда, намного более скромные, чем в карбоне), палеофитные папоротники, "семенные" папоротники (птеридоспермы), палеофитные хвойные (типа кордаитов). Не все из них с успехом перешли во вторую половину триаса. Кордаиты так и вовсе вымерли. Но последним на смену на просторах северной части Пангеи ещё в перми начали расти и развиваться хвойные мезофитные. Собственно, ещё в пермском периоде на территориях будущих Европы и Азии (частично Северной Америки) у растений начали появляться новые формы, которые должны были сменить устаревшие. Великое вымирание с вероятностью близкой к 100% очень сильно притормозило этот процесс. А так, собственно, уже возникли на севере и начали ползучее распространение на юг цикадовые и гингковые, сосновые (которые тогда и травянистыми были) и араукариевые, беннетиты и дептириевые папоротники. На севере Пангеи эти "новые" растения практически полностью заменили "старые" уже во второй половине триаса. Юг Пангеи этого события ждал до первой трети уже следующего юрского периода. В принципе, реликтов пермской эпохи и там, и там оставалось предостаточно (на юге больше), но они играли всё меньшую и меньшую роль.
Наземная фауна триаса. Членистоногие
Членистоногие обитатели суши очень сильно пострадали во времена Великого вымирания на границе пермского и триасового периодов. Насекомым так и вовсе пришлось начинать свою эволюцию чуть ли не с нуля. Несладко пришлось и другим членистоногим суши. Просто катастрофически уменьшилось разнообразие многоножек. Очень сильно уменьшились в количестве и разнообразии паукообразные. А ракообразные суши навсегда уменьшились до современных мокриц. В триасе восстановление количества и разнообразия сухопутных членистоногих шло очень медленно. Медленно, безо всяких скачков, но верно. Если в пермском периоде возникло около 20 отрядов насекомых, часть из которых (хотя и в малом числе экземпляров) перешла в триас, то в этом самом триасе эволюция явила свету только три новых отряда. Правда, эти отряды сыграли немалую роль в насекомьем мире. В триасовом периоде на свет появились отряды прямокрылых (предки современных кузнечиков и саранчи) в середине периода; двукрылых (современные мухи и комары) в конце периода и перепончатокрылых (современные осы, пчёлы и муравьи) перед самым триасово-юрским вымиранием.
Это были ещё только предки современных представителей отрядов, так как привычной пищи для основной массы кузнечиков, мух и пчёл ещё не было. Не подвезли ещё в триас покрытосеменные растения с цветками, пыльцой и нектаром, а также мягкими травянистыми стеблями, богатыми вкусными сахарами. Приходилось представителям этих достаточно продвинутых насекомьих отрядов пробавляться достаточно жёсткой листвой голосемянных и их же псевдопыльцой и достаточно жёсткими семенами. Считается, что именно тогда двукрылые, которым надоела жёсткая и малопитательная растительная пища, ударились в кровопийство. В принципе, что в триасе, что сейчас, этим балуются в основном самки, которым белки крови жертв необходимы для нормального созревания яиц. Самцы по сию пору посажены на растительную диету. В триасе практически отсутствовали наземные отряды жесткокрылых жуков. Жуки, которые сейчас являются самыми многочисленными обитателями суши (особенно по видовому разнообразию!), в триасовом периоде предпочитали пресноводную среду. То есть были они подобием нынешних хищных жуков-плавунцов, которые конкурировали за пищевые ресурсы с личинками стрекоз и стрекозоподобных, а также с пресноводными мелкими хищными рыбами или мальками крупных. На сушу они выходить остерегались, так как в триасовом периоде там было слишком много любителей схрумкать вкусную членистоногую тушку. Многочисленные мелкие насекомоядные лепидозавроморфы, архозавроморфы и синапсиды после какого-никакого восстановления биосферы на суше буквально кишили. Самым, пожалуй, резким эволюционным рывком сухопутных членистоногих стало появление в конце триаса "настоящих" пауков. То есть тех паукообразных, которые научились плести паутину и вырабатывать мощный секрет для осуществления внешнего пищеварения, который вскоре превратился в яд, который пригоден и для обороны, и для атаки и добычи пищи.
Наземная фауна триаса. Амфибии
Амфибии изрядно настрадались в пермском периоде, будучи вытеснены синапсидами, диапсидами и парарептилиями из всех "вкусных" экологических ниш в малопродуктивные пресные воды (откуда они в девоне и выбирались на сушу, то есть произошло возвращение домой). Наверное в виде компенсации за эти страдания (хотя в тех же пресных водах амфибии в перми были королями) они не так сильно пострадали в результате Великого вымирания как другие позвоночные суши, хотя потери были весьма и весьма чувствительными. Тем не менее, триасовый период стал временем частичного реванша амфибий, когда они попытались быть чем-то большим, чем рыбоядные живые капканы рек, озёр и болот, но и последним периодом, когда они чувствительно могли влиять на биоценозы. Лидирующей группой триасовых амфибий были темноспондильные (расчленённопозвонковые) лабиринтодонты (в принципе, как и в пермском периоде). В процессе эволюции они приобрели немало черт, свойственных их эволюционным конкурентам. Влажная тонкая кожа, активно участвующая в газообмене, стала значительно более сухой, укреплялась чешуёй и остеодермами. Укрепились челюсти, увеличилось количество и отточилась острота зубов. Морфология у амфибий стала значительно более рептильной.
Подавляющее большинство триасовых темноспондилов представляли собой своего рода крокодилов, весьма неплохо для амфибий забронированных. Правда, "крокодилы" эти обладали слабой мускулатурой лап и хвоста, да и кусь их был мягко говоря так себе. Многочисленные длинные и острые зубы могли только удерживать, да травмировать добычу, но никак не умерщвлять и, тем более, разделывать на удобные для поглощения части. Отсутствие подвижной шеи тоже немало мешало охотничьим достижениям этих "живых капканов". И всё равно в начале триаса амфибии даже пытались стать практически наземными животными, связанными с водой только размножением (например, гондванская Лидеккерина). Правда, эту охоту к наземному существованию у амфибий быстро отбили бурно эволюционирующие диапсиды. Для стремительных и зубастых архозавров даже бронированность и большие размеры наземных темноспондилов препятствием вовсе не являлись. Пришлось амфибиям возвращаться в пресные воды. К счастью для них пресными водами совершенно не заинтересовались вторичноводные ящеры - все эти ихтиозавры и плиозавры. Их привлекало море, а не реки, озёра и болота. Это и спасло амфибий, которые смогли удержаться в экологической нише крупных пресноводных засадных хищников. А "зверушки" были действительно крупными. До размеров пермского прионозуха (7-9 метров) не дотягивали, но 5-6-метровой "лягушкой" в триасовом периоде никого удивить было нельзя.
А концу периода появились и предки настоящих лягушек. Первые находки беспанцирных лиссамфибий (ещё исключительно хвостатых) относятся как раз к позднему триасу. Но были эти амфибии ещё очень редкими и чрезвычайно несмело осваивали роли небольших преимущественно насекомоядных животных, живущих на стыке двух сред. А потом пришло очередное вымирание. Вымирание на стыке триасового и юрского периодов привело к почти полному исчезновению темноспондильных амфибий. В юрский период смогли перейти немногочисленные представители от силы нескольких родов. Зато выжили предки современных лиссамфибий, что позволило продлить время существования этого класса существ до наших дней.
Архозавры триаса и их родичи
Предки архозавров (архозавроморфы и архозавроподобные (архозавроформы)) возникли ещё в пермском периоде. Интересно, но они в конце этого самого периода перед Великим вымиранием составляли до 40% всех относительно крупных позвоночных суши, лишь немного уступая синапсидам, а в размерном классе "вокруг небольшой собаки" и превосходя синапсид численностью. В крупный размерный класс архозавроморфы и архозавроформы не лезли (там синапсиды властвовали), но и на мелкий не претендовали (там было не протолкнуться от цинодонтов с разными там ящерками-лепидозаврами). До Великого вымирания успели прокачать несколько очень важных эволюционных приспособлений: выделительную и дыхательную систему (что очень помогло в дальнейшем их потомкам), частично теплокровность и выпрямленность конечностей под туловищем (брали пример с синапсид). Внешне предки архозавров напоминали очень стройных (до даже излишней поджарости, схожей с анорексией) ящеркообразных собачек на длинных, тонких ногах, покрытых вместо шерсти чешуёй или остеодермами. Весьма существенная часть архозавроморф и архозавроформ успешно пережила пермско-триасовое вымирание. Часть из них решила развивать предковые качества архозароморфов, правда, увеличиваясь в размерах и прибавляя в комплекции. Таких линий про-архозавров было немало, и поначалу они (в отсутствии конкуренции были довольно успешны).
Эритрозухиды представляли собой достаточно крупных (2-5 метров в длину и до 400 кг массы) наземных хищников, которые попытались было занять место почивших в бозе горгонопсид, но неудачно. "Настоящие" архозавры быстро поставили их на место, обрекая на вымирание. Протерузухиды стали очередной попыткой эволюции создать "крокодила". Только не амфибийную модель "живого капкана", которых немало плавало и лежало на дне и отмелях пермских и триасовых болот, рек и озёр. А модель достаточно проворного и быстрого хищника, способного добыть свою жертву или мощным броском на берегу или мелководье, или преследовать её в воде. Ребята эти были немаленькими (до 4 метров и 160 кг) и весьма зубастыми и проворными. Растительноядные ринхозавры стали попыткой архозавроморфов что-то противопоставить подавляющему преимуществу крупных синапсид-дицинодонтов в фитофагстве. Они, правда, быстро уступили нишу поедателей сочных зелёных частей растений. Зато вдумчиво прокачали возможности поедателей корней и корневищ. До роющих бивней не додумались, но крупные ковыряющие и выдирающие зубы вполне смогли отрастить. Подчеркну, что все эти "зверюги", которые неплохо расплодились после Великого вымирания, архозаврами ещё не были, а представляли боковые линии общих предков. Из этих линий мало кто перешёл даже во вторую половину триаса.
Но в самом начале триасового периода появились уже архозавры настоящие. Это были, в принципе, те же небольшие чешуйчатые и остеодермовые "собачки", но уже вставшие на полностью выпрямленные задние конечности. Ранее этих "собачек" называли словом "текодонты", подразумевая общее для них строение зубов, когда каждый зуб находился в специальной ячейке ("теке"). Такое зубное размещение облегчало потери зубов, благоприятствовало выращиванию новых, но препятствовало правильной зубной окклюзии (смыканию), что породило у потомков первых архозавров большие проблемы с освоением такого навыка, как жевание. Проблемы проблемами, но первые архозавры были ещё и весьма шустрыми. Шустрыми благодаря строению тазобедренного сустава, позволяющего щеголять двуногой выпрямленной походкой. Шустрыми благодаря своей теплокровности. Через весьма неприличное малое с точки зрения эволюции время только появившиеся архозавры разделяются на две эволюционных линии. Их условно можно назвать "крокодильей" и "птичьей". Хотя, почему условно? Ведь действительно первая линия в итоге привела к современным крокодилам, а вторая - к современным птицам. И первоначально явно выигрывала в эволюционной гонке "крокодилья" версия архозавров. Псевдозухии (так их сравнительно недавно называли) стали доминирующими позвоночными суши вплоть почти до конца триасового периода. Да и значительно позже они неплохо боролись за главенство в отдельных биоценозах и даже смогли успешно вторгнуться в весьма нелюбимые архозаврами морские воды. Но это тема уже следующей "сказки" цикла!
Триас. Время псевдозухий
Название клады "псевдозухии" переводится как "ложные крокодилы". Название, конечно, некорректное, так как самые что ни на есть крокодилы "настоящие" (современные представители рода Настоящие крокодилы) тоже относятся к псевдозухиям. Псевдозухии выделились в начале триасового периода из архозавроморфов одновременно с ближайшей родственной группой - орнитодирами, вместе с которыми псевдозухии образуют кладу архозавров. Принципиальное анатомическое отличие между двумя этими группами состоит в строении лодыжки. Непринципиальных было изначально немного, но они в течение триасового периода сделали псевдозухий и орнитодир совершенно непохожими друг на друга. Первоначально псевдозухии и орнитодиры были чрезвычайно похожими друг на друга. Это были небольшие (до 1,5 метров длины и килограмм в 15 массой) бипедальные хищники, охотящиеся на насекомых, небольших синапсид и лепидозавров. Но ранний триас - это ранний триас! Все спешили занять освободившиеся после Великого вымирания ниши. Практически все группы выживших и только возникших амниот старались занять свободные места и прокачать для этого нужные качества. Из синапсид одни ударились в крупный размерный класс фитофагов, другие начали стремительными темпами развивать у себя признаки млекопитающих. Завроптеригии устремились в моря. Орнитодиры начали вдумчиво работать над подвижностью, теплокровностью и начали смотреть в небо. Псевдозухии же сделали ставку на размеры, максимальный охват экологических ниш и захват ниши крупных хищников.
И это им удалось! К середине триасового периода подавляющее большинство крупных наземных и полуводных животных - это как раз псевдозухии. Конкуренцию им составляли разве только синапсидные дицинодонты среди растительноядных суши, да амфибии в пресных водах. Псевдозухии заняли все возможные ниши на суше: среди них были мелкие и крупные виды, растительноядные, всеядные и хищные. Они успешно (за счёт большей подвижности) конкурировали с амфибиями в пресной воде. Не совались псевдозухии в моря, там своих уже полностью адаптированных диапсид хватало. Хотя уже в юрском периоде у них получилось проникновение и в морские биоценозы. Не успели псевдозухии и в воздух. Тут раньше подсуетились орнитодиры, выделив из своей среды птерозавров. Хотя некоторые учёные (практически безосновательно, вообще-то) выводят птиц именно от псевдозухий триаса, а вовсе не от динозавров юры. Во второй половине триасового периода псевдозухии стали главенствующей группой наземных амниот. Теплокровные, подвижные (хотя и опустившиеся в большем своём числе на четыре точки), занявшие самые разнообразные ниши, они были настоящими хозяевами планеты. А сколько у них получилось вариаций, хотя всех и объединяла относительно длинная "крокодилья" морда и нелюбовь к чешую (предпочитали остеодермы, а некоторые и вовсе голую кожу)!
Этозавры - бронированные по самое не могу этими самыми остеодермами псевдозухии, напоминающие своим обликом более поздних динозавров - анкилозавров. Более крупные виды (достигающие 3-4 метров в длину и до 300 кг массой) были строго растительноядными, более мелкие виды предпочитали всеядность. То есть могли и попастись в зарослях саговников или папоротников, а могли и побегать за насекомыми или зазевавшимися предками ящериц или млекопитающих. Бегали они, правда, плохо. То ли образ жизни, то ли ещё какие-то причины заставили этозавров отказаться от выпрямленных под туловищем ног. Их конечности "по-старорептильному" снова оказались врастопырку (собственно, это и современным крокодилам свойственно). Фитозавры - это полуводные псевдозухии, которые имели удивительное сходство с современными крокодилами (скорее, гавиалами), хотя вовсе не были их предками. Среди них встречались как растительноядные (название переводится как "растительный ящер"), так и всеядные. Но большинство фитозавров являлись специализированными рыбоядами, причём рыбалкой занимались в пресной воде, лишая пропитания последних крупных темноспондильных амфибий. Эти "рыбаки" на рыбной (а, возможно, и на амфибийной) диете дорастали до весьма нескромных размеров. Крупнейшие представители фитозавров имели массу свыше 2 тонн и дорастали до 9-10 метров. Интересно, кстати, что несмотря на полуводный (а то и полностью водный за исключением размножения) образ жизни и немалую массу, фитозавры в большинстве своём любили щеголять выпрямленными под туловищем конечностями. Вот представьте себе 10-метрового гавиала на длинных стройных ножках! Потрясающее зрелище!
Попозухидам (или попозавридам) с названием не повезло (если на русском читать!), но они в триасе внимания совсем не обращали, так как были группой многочисленной и разнообразной. Все они были хищниками и хищниками достаточно крупными. Интересно, кстати, что часть попозаврид, а именно ктенозаврисциды, щеголяли спинными парусами, подобными таковым у раннепермских пеликозавров (которые и вовсе синапсиды). Таким украшениям мог похвастаться китайский ксилузух (4 метра в длину) или американский аринозавр (4,5 метра). Но большинство попозухид или попозавров предпочитали внешность крокодилообразных терапод (это которые динозавры). Попозавр ("ящер из Попо", что в Техасе) обликом напоминал скорее велоцираптора (который жил намного позже!), чем какого-то там крокодила. А ещё в триасе были крокодиломорфы. Вплоть до конца периода они были некрупными двуногими существами (те, кто покрупнее, мог опускаться и на 4 конечности). Они не успели найти себе подходящих экологических ниш среди крупных "зверюг". На суше им мешали другие псевдозухии, в пресные воды не давали уйти фитозавры. Так что оставалась только роль мелких хищников, конкурирующих с первыми динозаврами. Вот только крокодиломорфы единственные из псевдозухий пережили вымирание конца триасового периода.
Триас. И полетели птерозавры...
Массовые вымирания - это не всегда плохо. Нет, конечно, для тех, кто вымер, это плохо однозначно. Но зато для выживших открываются такие перспективы, что просто дух захватывает! Освобождается масса экологических ниш, да ещё выжившие (самые креативные и пассионарные (прямо-таки по Гумилёву!)) и новые сами для себя открывают. Вот не интересовались амниоты морской средой обитания в перми, а случилось Великое вымирание, и сразу же в моря отправились предки ихтиозавров и завроптеригий. А кое-кто всерьёз задумался о воздушной среде. Первыми об этом задумались лепидозавры - родичи современных змей, ящериц и гаттерий. Но эти оказались способны только и исключительно к планирующему полёту (скорее, парашютированию!), да ещё и использовали для этого достаточно неудобные жёсткие приспособления (вроде ложных ребёр икарозавра), не предусмотренные изначальной конструкцией тела амниот. Куда более последовательно и изобретательно к покорению воздушной среды подошли представители другой ветви диапсид - архозавры (родичи современных крокодилов и птиц), вернее та их ветвь, что в итоге к птицам и привела - орнитодиры. Около 240-245 миллионов лет назад орнитодиры расходятся на две эволюционные ветви, представители каждой из которых успешно покорили воздушное пространство. Это ветви птерозавров и динозавров. Первыми подсуетились птерозавры, взмыв в воздух уже в позднем триасе (самые старые датированные находки относятся к давности в 220 миллионов лет). Динозавры подотстали на 60-70 миллионов лет, начав летать только в позднеюрские времена.
В принципе, триасовые птерозавры летунами были ещё так себе. Королями неба они стали в следующем - юрском периоде. Но ведь надо было с чего-то начинать! А вот, кстати, начало-то практически и неизвестно. Как у ихтиозавров отсутствуют находки полуводных или хотя бы ещё не полностью адаптированных к водной среде предков, так и у птерозавров не обнаружено планирующих или вовсе нелетающих переходных форм. Ну не случилось у них своего археоптерикса! Сейчас если и не предковой, то родственной предкам птерозавров линией считают небольших архозавров лагерпетид. Совсем недавно они считались непосредственными предками динозавров, но филогенетический анализ постановил, что куда ближе они к птерозаврам. По ряду признаков (строение передних конечностей, когти, идеально подходящие для лазания, развитое среднее ухо, позволяющее сохранять равновесие) были они лазающими древесными животными. Вполне возможно, что обладали и зачатками кожно-мышечной перепонки, чему, к сожалению, никаких доказательств найти не удалось. Тем не менее, версия интересная и небезосновательная. Осталось найти ей подтверждение в виде планирующих и порхающих форм. Первые летающие ящеры, которые жили в позднем триасе и ранней юре, унаследовали много черт своих нелетающих бескрылых предков. Слабая пневматизация скелета (у меловых птерозавров она была очень высокой, даже выше, чем у современных птиц), длинный хвост (иной раз превышающий длину тела), зубастую пасть. Да и крылья пока были так себе: короткие и небольшой площади. Так что триасовые птерозавры к длительным полётам способны не были, так, перепорхнуть с ветки на ветку.
Интересно, что ранние модели птерозавров иной раз удивительно напоминали млекопитающих своим внешним видом. Так анурогнатиды (скорее всего, самый архаичный активно летающий образец птерозавра), если особо не присматриваться, вообще выглядели летучая мышь летучей мышью. Позднетриасовый-раннеюрский диморфодон также выглядел как насекомоядная крыса с крыльями интересной формы. Связано это было с тем, что тела некоторых птерозавров покрывали так называемые пикнофибры, внешне весьма напоминающие шерсть млекопитающих. Да и экологические ниши эти птерозавры занимали схожие с теми животными, которые появятся спустя только десятки миллионов лет. Вот, правда, "настоящие" рамфоринхи (так сказать, идеальный образец для ранних нептеродактилоидных птерозавров), появившиеся незадолго до триасово-юрского вымирания были уже более "рептильные" обликом. Триасовые модели птерозавров не выдержали конкуренции со стороны своих потомков в периоде юрском. Королями неба стали птерозавры более продвинутые - птеродактилоиды. Но это тема уже другой сказки.
Триасовые синапсиды. Часть 1.
Относительно успешно Великое пермско-триасовое вымирание пережили три группы синапсид: тероцефалы ("звероголовые"), их двоюродные братья цинодонты ("собакозубые") и более отдалённые родичи дицинодонты ("двусобакозубые"). Во всех этих группах ещё до вымирания начали накапливаться признаки, присущие современным млекопитающих. Где-то они проявлялись частично и мало, где-то в большом количестве, а где-то собрались в единую кучку. А вот когда эти маммальные признаки собрались все вместе, тогда-то и появились "настоящие" млекопитающие и произошло это ещё до конца триаса.К маммальным признакам относят теплокровность, наличие волосяного покрова (необязательное условие), дифференциация зубного аппарата, единая зубная кость нижней челюсти, вторичное нёбо, три слуховые косточки в среднем ухе, отсутствие заглазничной перегородки, выпрямленные под туловищем задние конечности, а главное, это выкармливание детёнышей молоком - выделениями особых желез, которые, судя по всему эволюционировали из потовых. Меньше всего таких признаков накопили у себя представители дицинодонтов. Из всего вышеперечисленного они только теплокровность приобрели (мелкие виды и пушистыми были), да успели поработать с конечностями и зубами. Причём с зубами поработали так косячно, что предпочли в итоге от них практически избавиться. У большинства видов дицинодонтов остались в пасти всего два клыка в верхней челюсти. Задние конечности они выпрямить сумели, а вот с передними вышла заминка. Развернуть локтевой сустав назад сумел только один позднетриасовый вид, но о нём позже.
В принципе, такая "немаммальность" дицинодонтов не сильно расстраивала. Они брали численностью и фактически полной оккупацией ниши средних и крупных растительноядных животных. Размеры же этих "зверушек" варьировались от крупной собаки (листрозавры) до неуклюжего приземистого быка (каннемейерия). Самыми же крупными представителями группы стали её последние представители, жившие уже тогда, когда ринхозавры и растительноядные динозавры практически лишили дицинодонтов кормовой базы, а появившиеся крупные хищные динозавры начали их стремительно подъедать. Вот и пришлось наращивать большую тушку, чтобы успешнее отбивать посягательства на неё. Североамериканские плацериасы вырастали до 3,5 метров и наедали тушку свыше 1,5 тонн. Ещё крупнее были их южноамериканские родичи ишигуаластии (свыше 2 тонн). Но всех по размерам обошли представители исторически самого последнего вида дицинодонтов - лисовиции, 210 миллионов лет назад бродящей по болотистым низменностям будущей Польши. Лисовиция достигала длины в 4,5-5 метров и могла весить 7, а то и 9 тонн! В итоге, это сделало "зверушку" самым крупным немаммальным (которые не "настоящие" млекопитающие) синапсидом в истории планеты. А ещё лисовиция знаменита тем, что смогла развернуть локтевой сустав назад, поместив передние конечности под туловищем, а не врастопырку. Дицинодонты полностью вымирают, даже не дождавшись массового вымирания на границе триасового и юрского периодов. Больше признаков млекопитающих было у тероцефалов. Собственно говоря, тероцефалы - это более примитивная версия цинодонтов, ставших непосредственными нашими предками. Они начали вдумчиво преобразовывать череп и конечности, причём делать это стали раньше, чем цинодонты. По-крайней мере, появление вторичного нёба и исчезновение заглазничной перегородки у некрупных тероцефалов-бауриид фиксируется раньше, чем у цинодонтов. Кстати, и зубы у бауриид были больше похожи на зубы настоящих млекопитающих, которые питаются растительностью - широкие с перетирающими бугорками. Но всё большинство тероцефалов являлись отпетыми мясоедами, несущими немалые сабельные клыки, столь модные в предыдущем пермском периоде.
Тероцефалы вымирают первыми из синапсид триаса, не выдерживая конкуренции с родичами-цинодонтами, а также с расплодившимися и укрупнившимися архозаврами.
Триасовые синапсиды. Часть 2
Цинодонты - это самые продвинутые синапсиды из тех, кто пережил Великое вымирание на границе пермского и триасового периодов. Были они теплокровными, покрытыми шерстью, с дифференцированной на резцы, клыки и коренные зубной системой, вторичное нёбо (сформировалось в начале триаса) позволяло одновременно жевать и дышать. Нижнюю челюсть формировала уже в основном зубная кость, а "лишние" кости перекочевали в среднее ухо, сформировав орган слуха, отличный от такового у рептилий и синапсид предыдущих модификаций. Возможно даже, что и потовые железы у цинодонтов второй половины триаса начали преобразовываться в молочные, и они уже выпаивали своих детёнышей молоком. Такое сходство с млекопитающими неудивительно, ведь именно цинодонты стали их непосредственными предками. Правда, обладали они и теми признаками, что роднили их с более примитивными синапсидами и даже с рептилиями. К таким признакам относились наличие клоаки (расширения конечного отдела кишечника, куда впадают протоки выделительной и половой систем), откладывание яиц, передние конечности "врастопырку". Интересно, что те же самые архаичные особенности имеют и современные однопроходные (утконос и ехидна), но они млекопитающие, а цинодонты - это цинодонты. Хотя, в принципе, с точки зрения кладистики, все современные млекопитающие являются цинодонтами, как прямые потомки.
И тут возникает вопрос: где проходит граница между "ещё" цинодонтами и "уже" млекопитающими? Какой параметр из крупных не выбирай, тот же утконос - это "ещё" цинодонт. Остаётся разделять цинодонтов и "настоящих" млекопитающих исключительно по таким мелким деталям анатомии, как строение челюстей (особенно нижней и челюстного сустава) и внутреннего и среднего уха. Ладно, позднетриасовых цинодонтов и ранних млекопитающих невооружённым (да и вооружённым тоже!) глазом практически не отличить. Разница там, как говорится, на тоненького. Все они были достаточно мелкими животными. В основном всеядными, но встречались и растительноядные, и мелкие хищники (охотились на насекомых, мелких диапсид и себе подобных. Хотя встречались и достаточно крупные (с хорошего кабана размером) растительноядные вроде представителей группы гомфодонтов. Раннетриасовые же цинодонты попробовали поиграть в крупный размерный класс среди хищников и немного покошмарить биоценозы. Начинали они с небольших (размером с утконоса), но весьма зубастых тринаксодонов. Зубы были полностью дифференцированы, но верхний ряд не смыкался полностью с нижним, что исключало жевание, да и менялись эти зубки на протяжении всей жизни, как у рептилий. Охотился тринаксодон (один из самых лучше всего изученных цинодонтов) на всё, с чем мог справиться, а справиться он мог почти с любым животным размером с себя. А вот циногнат был куда серьёзнее! Вырастал он до 2,5 метров в длину, весил за сотню кг и был весьма проворен, так как почти сумел правильно развернуть локтевой сустав. Это был вполне конкурентоспособный, весьма крупный для первой половины триаса хищник. Охотился и на добычу сравнимую с собой размерами и даже крупнее (дицинодонты-листрозавры и др.). Большинство псевдозухий нервно курили в сторонке! В конце триаса (практически одновременно с динозаврами) появляются и "настоящие" млекопитающие. Учёные, правда, сейчас уже окончательно запутались, кого считать прямо-таки самым настоящим, а кого маммалиаморфом или маммалиаформом. Множат, как говорится, сущности без нужды! Тех же харамиид (первых "млекопитающих", которые точно перешли на растительную пищу) относили то к маммалиформам, то к аллотериям ("другим зверям"). Предков современных однопроходных то к самым примитивным маммалиморфам относили, то выводили их отделение от общего ствола уже в юрском периоде. В общем, всё запутано! Но факт остаётся фактом. В конце триаса млекопитающие уже появились и практически сразу спрятались в лесную подстилку и в темноту ночи. В мире наступало время динозавров!
Фауна триаса. Динозавры
Когда мы говорим "мезозой", то подразумеваем динозавров, когда мы говорим "динозавры", то подразумеваем мезозой. Высокопарно? Высокопарно, да ещё и не совсем верно. Главную роль в наземной фауне динозавры стали играть только в юрском периоде, в чём им немало помогло крупное вымирание на границе триаса и юры. В триасовом же периоде они были всего-навсего "одни из". Небольшие, теплокровные и достаточно шустрые двуногие животные только нащупывали свои экологические ниши. Да и конкурентов хватало! Тут вам и родичи-псевдозухии, тут и выжившие после перско-триасового вымирания синапсиды. В общем, в триасе скучно не было. Динозавры выживали как могли. В нашем представлении динозавры - это большие и очень большие "зверюги" вроде диплодока, стегозавра, трицератопса или тиранозавра. В принципе, частично это верно, но верно для динозавров юрского или мелового периодов, хотя и тогда небольших видов хватало. Триасовые же динозавры в основной своей массе были мелочью, о которой приличным крупным животным и говорить не стоило. С точки зрения какого-нибудь тератозавра (это не динозавр, несмотря на название, а псевдозухия), достигающего 5-6-метровой длины, или родственника млекопитающих 3-метрового циногната, ранние динозавры могли рассматриваться только как добыча. Правда, добыча весьма сложная, так как (благодаря бипедальности) весьма шустрая.
Первые динозавры появляются практически одновременно с первыми "настоящими" млекопитающими около 230 миллионов лет назад (есть более ранние находки, вплоть до 243 миллионов лет назад, но большинство учёных относят их не к динозаврам, а к примитивным орнитодирам - ветви архозавров, которая дала миру птерозавров и динозавров). И вопросов к происхождению динозавров не меньше, чем к происхождению млекопитающих. Как маммальные признаки накапливались в самых разных группах триасовых цинодонтов, так и "дино"-признаки (строение черепа, бедренного и голеностопного суставов) обнаруживается в самых разных линиях орнитодир и (позднее) динозавроморфов. Если говорить совсем просто, то предок или предки динозавров не обнаружен/не обнаружены. Сейчас возможно только говорить о ранних "точно" динозаврах, но никак об их "точно" предках. И даже родство ранних динозавров с последующими их линиями можно только предполагать. Геррерозаврид, к примеру, долгое время считали непосредственными предками более поздних тераподов. Уж очень они были схожи, практически копия друг друга. И только последние исследования показали, что геррерозавриды были только морфологически схожи с тераподами. Это оказалась совершенно другая линия динозавров, даже не пережившая триасово-юрское вымирание. Точно можно сказать только про пару вещей: род свой динозавры ведут из западных областей Гондваны и первые динозавры были небольшими (0,5-1,5 метра в длину) и обладали хрупким телосложением.
Одним из первых несомненных динозавров был южноамериканский эораптор. Он пришёл на смену геррерозавридам в том плане, что теперь его подозревают в том, что он являлся предком всех последующих терапод от аллозавра до домового воробья. Впрочем, часть исследователей относят его к предковой линии завроподоморф, то есть бронтозавров и прочих гигантов следующих эпох. Это был метровой длины ловкий охотник на насекомых и мелких диапсид и синапсид. Его ровесницей (227-233 миллиона лет назад) и соседкой была сатурналия, которая гораздо больше подозревается в родстве с теми же бронтозаврами. По-крайней мере, сатурналия была уже растительноядным или всеядным динозавром. Но это ящеротазовая ветвь динозавров. А где же прячутся корни птицетазовой ветви? А всё там же, в лесах триасовых Бразилии и Аргентины. Живший примерно в это же время писанозавр, у которого уже проявляются часть особенностей тазового пояса орнитисхий. Традиционно для триаса это был крайне небольшой (до 1,5 метров и 12-15 кг) растительноядный динозавр. Стоит, правда, заметить, что к концу триаса динозавры подросли и, главное, расселились практически по всей Пангее. Крупнейший динозавр триаса был найден уже на территории будущей Европы. Платеозавр, относящийся к пока ещё не опустившимся на все 4 конечности завроподоморфам, вырастал до 10 метров и мог откармливаться на растительной пище до 4-6 тонн.
Палеогеография юрского периода
Юрский период начался 201 миллион лет назад и закончился 145 миллионов лет назад. Это второй период мезозойской эры, который продлился более 56 миллионов лет. Название своё получил за счёт Юрских гор (часть Альп в Швейцарии и во Франции, где были впервые описаны отложения данного возраста). За эти 56 миллионов лет воды утекло немало, как в прямом, так и в переносном смысле. С точки зрения палеогеографии, начало и конец юрского периода - это совсем разные периоды. Начало - это почти Пангея, только-только распавшаяся на Лавразию, Западную и Восточную Гондвану, с её жарким и засушливым (поистину триасовым!) климатом. Конец - раскрытие центральной и частично южной областей Атлантического океана, юго-западной части океана Индийского и весьма большая трансгрессия морей. Наступление моря к концу юры было настолько велико, что даже единая ещё и не думающая распадаться Лавразия стала превращаться в архипелаги крупных островов (правда, очень крупных!). Но это было в конце периода. Начало же было весьма похоже на триас. Да, Пангеи уже не существовало. Океан Тетис (ныне самым значимым его остатком служит Средиземное море) буквально разрезал бывший единый супер-континент пополам, отделив друг от друга его северную (Лавразия) и южную (Гондвана) части. Мало того, ещё и Гондвана начала распадаться. Уже в первой половине периода она разделилась на Гондвану Западную (будущие Африка и Южная Америка) и Восточную (пока соединённые в единое целое будущие Индостан, Мадагаскар, Австралия и Восточная Антарктида). В первой же половине юрского периода начинает расти Тихоокеанская тектоническая плита, постепенно убирая своих конкурентов в лице плит Идзанаги, Фараллон и Феникс, которые составляли древний океан Панталасса. В середине периода Мадагаскар и Индостан отрываются от остальной Восточной Гондваны и устремляются в свободное плавание - Мадагаскар поближе к Гондване Западной, а Индостан к далёкой Лавразии. Лавразия тоже обозначает тенденции к распаду. Между Гренландским и Балтийским щитами возникает так называемый Трансконтинентальный Лавразийский морской проход - пролив шириной в пару сотен километров, соединивший полярные области Панталассы с зарождающимся Атлантическим океаном. Позднее он закрылся, но место "слабости" было уже нащупано. Именно здесь в меловом уже периоде начался "развод" Евразии с Северной Америкой. Во второй половине периода из-за расхождения континентальных плит сильно увеличивается площадь мелководных морей (вышеупомянутая морская трансгрессия). Мало того, моря начинают активно затапливать бывшую сушу. Лавразия покрывается многочисленными внутриконтинентальными морями, которые практически расчленяют её на множество весьма крупных островов. В среднем уровень моря в конце юрского периода превышал современный на 75 метров. В конце периода началось расхождение будущих Южной Америки и Африки и раскрытие южной Атлантики.
Юрский период. Климат и условия жизни
Юрский период - второй период мезозойской эры, который начался 201 миллион лет назад и закончился 145 миллионов лет назад. Длился он 56 миллионов лет. А 56 миллионов лет это, как не крути, много. Естественно, планета не была всё это время неизменной. Но менялась не только география (об этом была предыдущая статья цикла 8 дней назад), но также условия жизни и климат. Вот с первых-то и начнём. В течение периода плавно росло содержание кислорода в атмосфере. А начинался этот рост с показателей даже меньше триасовых. Период ведь начался с триасово-юрского вымирания, которое, скорее всего, было вызвано масштабным извержением вулканов. В итоге, содержание кислорода уменьшилось с 18 до 12%, а содержание углекислоты увеличилось с 0,7 до почти 3%. К счастью, триасово-юрское вымирание только краешком задело растения, которые достаточно быстро начали исправлять ситуацию. То есть активно потреблять углекислоту и выделять кислород. Без этого они, простите, не могут, это основа их жизни. За 56 миллионов лет растения смогли увеличить содержание кислорода до 15-16% и уменьшить содержание углекислоты до 1% (всего в 300 раз больше, чем сейчас). То есть весь юрский период на планете было достаточно душно. А с учётом того, что углекислый газ является ещё и газом парниковым, то и тепло, если не сказать, что жарко. Правда, не всегда и не везде. На разных кусках распавшейся Пангеи начали складываться свои особенности климата. В первой половине периода среднепланетная температура составляла 20 градусов по Цельсию (сейчас без немногого 15). Но это была уже средняя температура по больнице. В конгломерате осколков южной Гондваны средний показатель был уже 25 градусов. И там было жарко и очень сухо. А вот на северах, где дрейфовала распадающаяся, да ещё и рассечённая на небольшие сравнительно части мелкими внутриконтинентальными морями, Лавразия было гораздо прохладнее. С чем это связано неизвестно, но лавразийские территории были на 8-10 градусов в среднем холоднее, чем гондванские. Можно только предположить, что это происходило из-за большего количества лавразийских земель в высоких широтах. На территориях будущих Канады, Аляски, Скандинавии, Уральских гор, Восточной Сибири зимой даже осмеливался выпадать и длительное время не таять снег, а уж в горах точно встречались ледники. Зато в плане влажности на севере было гораздо лучше, чем на юге. Дальнейшее расхождение материков во второй половине периода повлекло за собой увеличение количества мелководных морей и выравнивание климата по всей планете. Он становился жарким в низких и тёплым в высоких (вплоть до приполярных) широтах, но везде было достаточно влажно. Правда, на границе средней и поздней юры в северном полушарии получилось даже что-то оледенения. Но оно продлилось недолго. На планете на долгие миллионы лет воцарялся жаркий и влажный климат от полюса до полюса. Стоит, конечно, отметить, что на южном полюсе и в его окрестностях те же долгие миллионы лет не было суши, которая бы в условиях низких температур смогла бы спровоцировать похолодание. Да и в северном полушарии в конце юрского периода суша практически не заходила за полярный круг (66-я параллель).
Флора юрского периода
Юрский период - это второй период мезозойской эры, который начался 201 миллион лет назад и закончился 145 миллионов лет назад. Как известно, на границе триасового и юрского периодов произошло достаточно масштабное массовое вымирание. Но оно затронуло преимущественно животный мир моря и суши. В морях вымирают ряд систематических групп водорослей, но растения суши вымирание практически не затронуло. В юрский период шагнули те же растения, что и составляли основную часть наземной флоры конца триасового периода. А это были немногочисленные остатки былого величия гигантских споровых растений в виде папоротников, хвощей и плаунов, жили ещё так называемые семенные папоротники и, самое главное, многочисленные и разнообразные голосеменные растения. В юрском периоде (по-крайней мере, в первой его половине) у споровых растений был период ренессанса. Дело в том, что они весьма неуютно чувствовали себя в сухих условиях пермского и триасового периодов. Огромный супер-континент Пангея обладал весьма малым количеством внутренних водоёмов, а значит споровым растениям, тесно привязанным к воде своим способом размножения, просто негде было разгуляться. Влажный климат юрского периода и большое количество возникших солёных/морских и пресных водоёмов (следствие энергичного распада Пангеи, а следом и её крупных составляющих) позволило споровым значительно расширить ареал распространения. У них снова возникли достаточно крупные древовидные формы, хотя и значительно уступающие гигантам карбонового периода.
Но особо им не давали разгуляться истинные владыки растительного мира юрского периода - голосеменные растения. Будучи ещё в триасе доминирующей формой наземной растительной жизни, в юрском периоде голосеменные достигли своего расцвета. Такого многообразия видов и жизненных форм у них никогда не было до юры и никогда не было после юрского периода, когда у голосеменных появились эволюционные конкуренты, в итоге загнавшие голосеменных на эволюционные задворки в виде весьма узких экологических ниш или весьма неуютных климатических зон. В юрском же периоде голосеменные процветали, являя миру не только древесные и (редко!) кустарниковые формы, как сейчас, но и даже травянистые. Самое интересное, что большинство зон своего обитания голосеменные растения делили со своими, скорее всего, непосредственными предками - семенными папоротниками. Предковые формы, таким образом, категорически отказались вымирать и достаточно долгое время жили совместно со своими потомками. Последние семенные папоротники дотянули аж до второй половины мелового периода. А сами голосеменные в юрском периоде начали делиться на две группы: северную и южную. К "северянам" относились хвойные, которые в юрском периоде были представлены больше растениями, напоминающими современные кипарисы, но и что-то напоминающие современные ёлки и сосны тоже встречались. Также "северянами" являлись многочисленные листопадные гинкговые, которые в юре широко распространились по азиатской части Лавразии ("гинкговая тайга"). Ныне из всего огромного разнообразия этих растений сохранился только один-единственный вид - гинкго двулопастный, произрастающий сейчас только в нескольких парках восточной части Китая. А когда-то его родичи служили основными поставщиками мягких и сочных листьев для динозавров будущей Азии.
Среди "южан" тоже были хвойные голосеменные. Это араукариевые, которых частенько так и называют "южными хвойными". Листья у них редко были (и сейчас редко бывают) иглообразными, а потому были гораздо более привлекательными для гондванских динозавров. Во второй половине юрского периода араукариевые проникают и на лавразийские материки (один род до сих пор сохранился в джунглях Юго-Восточной Азии. Но "главными" среди "южан" были не они, а саговники и бенеттиты. Саговниковые (ныне живущие виды больше напоминают 10-12-метровые пальмы) в середине юрского периода настолько широко распространились по всем территориям бывшей Пангеи и дали такое видовое многообразие, что юрский и меловой периоды часто неофициально называют "саговниковой эрой". В юрском периоде они имели не только древесные, но и травянистые формы. Внешне саговники были схожи с бенеттитами. А бенеттиты - это весьма большая группа юрских голосеменных растений, зародившихся в южном полушарии, а потом распространившихся по всему земному шару (за исключением самых высоких широт суши). Их интересной особенностью было то, что их стробилы (шишки и шишечки, по-простонародному) были не раздельнополыми, как у остальных голосеменных, а обоеполыми, как у большинства современных покрытосеменных растений. И, судя по всему, именно бенеттиты стали их предками, а значит теми, кто в итоге похоронил главенство голосеменных в растительном мире.
Первые настоящие покрытосеменные или цветковые появляются в эволюционной истории ближе к концу юрского периода (150-160 миллионов лет назад). Первоначально это были водные и приводные растения типа кувшинок, а также лиановидные растения-полупаразиты густых лесов. Но их время ещё не настало. Более или менее серьёзную роль в построении мезозойских биоценозов они начали играть только в середине следующего - мелового периода. В юрском же периоде они были только редко встречающейся экзотикой, от которой шарахались растительноядные динозавры.
Морская фауна юры. Беспозвоночные
После Великого вымирания на границе пермского и триасового периодов моря были пусты и почти безжизненны. Вымирание смело с лица планеты 96% всех существующих морских видов. В триасовом периоде моря начали наполняться жизнью. Вымирание на границе триасового и юрского периодов морскую фауну затронуло незначительно. По этой причине юрские моря буквально наполнились живыми существами. Было только одно ограничение. Морская фауна юрских морей наотрез отказывалась идти в большие глубины, да и на просторы океанов выходила крайне неохотно. 99% биосферы юрских морей группировалось на глубинах от 200 метров и менее, предпочитая заселять материковые отмели и мелководные моря между расходящимися материками. Но в этих пределах она была весьма богатой, сравнимой, а то и превосходящей современную по разнообразию видов. По общей биомассе, правда, сообщества юрских мелководных морей сильно уступали кайнозойским, но сделали первый шаг к ним. Рифостроители прямо-таки воспряли духом после предыдущих периодов и активно взялись за это самое рифостроительство. Большой Барьерный риф у побережья Австралии начал зарождаться именно в юрском периоде. Причём именно в юрском периоде главными рифостроителями становятся полипы - прикреплённые минерализированные "взрослые" особи стрекающих - книдарий. Их свободноплавающие личинки в начале периода составили основу крупного зоопланктона, правда, малопитательного, да ещё и ядовитого.
Но начал широко распространяться и "настоящий" крупный зоопланктон, что сейчас, что тогда представленный мелкими (от долей миллиметра до десятка сантиметров) ракообразными. Стоит, правда, отметить, что в юрском периоде они ещё и близко не достигали современного количества. Но все эти "микро-креветки" и прочий "почти криль" уже существовали и создали немалую базу для процветания питающимися ими лучепёрыми и хрящевыми рыбами. Немалое значение среди беспозвоночных юрских морей приобретают высшие раки, а особенно их самая ценимая с точки зрения вкуса людьми часть - раки десятиногие. Именно в юрском периоде десятиногие раки начали образовывать современные отряды и приобретать свою немалую роль в качестве падальщиков и малоактивных хищников мелководных придонных сообществ. Но истинными беспозвоночными владыками юрских морей были не ракообразные, не прочие членистоногие и не какие-нибудь черви, а моллюски. Моллюски двустворчатые окончательно убрали в неуютные и малоаппетитные области обитания своих фильтрующих донных конкурентов - брахиопод. А моллюски головоногие вполне возможно вполне конкурировали с рыбами по численности особей и разнообразию видов. А разнообразие видов головоногих моллюсков в юрском периоде значительно превосходило нынешнее. Мало того, именно головоногие моллюски в лице аммонитов стали буквально маркером морских отложений не только юрского, но и последующего мелового периода. В моих краях (северная рязанщина была в юрском и меловом периодах дном мелководного моря) "чёртовы пальцы" (останки внутреннего скелета белемнитов) и многочисленные отпечатки в камне небольших аммонитов встречаются десятками на квадратный метр в любом месте, где на поверхность выходят известковые отложения мезозоя (а таких у нас немало).
В юрском периоде началась серьёзная конкуренция между головоногими, которые остались верны раковине, и головоногими, которые от неё активно избавлялись и, в итоге, к концу периода избавились. Самое интересное, что юрский, да и последующий меловой период так и не определили, кто "круче". Одинаково успешно в юре себя чувствовали монструозные аммониты (до 3 метров диаметра их закручивающейся в бараний рог раковины), белемниты, которые имели только массивный ростр (остаток раковины, убранный внутрь тела) и практически безраковинные предки современных каракатиц (которые уже обзавелись чернильным мешком) и кальмаров. Аммониты (которые были и маленькими, не достигая и 2 см в диаметре раковины) оказались тупиковой ветвью развития головоногих. Белемниты, которых совсем недавно считали предками каракатиц и кальмаров, тоже. Каракатицы современные являются базальной группой современных головоногих с кучей архаичных признаков (остатки раковины-ростра, равновеликие щупальца и ряд других), но они точно не происходили от несущих внутри своего тела "чёртов палец" (массивный ростр) белемнитов. Их непосредственные предки пока не обнаружены, но они точно были двоюродными братьями (или сёстрами!) белемнитов. Тем не менее, похожие на современных каракатицы (даже с чернильными мешками!) уже существовали в юрском периоде, да и первые кальмары (головоногие безо всяких признаков внешней и внутренней раковины и с разновеликими щупальцами) тоже начали покорять водное пространство.
Морская фауна юры. Рыбы
Юрский период - второй период мезозойской эры. Начался 201 и закончился 145 миллионов лет назад. После стерильности начала триаса моря наполнялись жизнью. На рыб триасово-юрское вымирание не сильно подействовало, видно определённый лимит для них был уже выбран, хотя те же брахиоподы массово вымирают при малейшем шухере. Но вот видовой состав рыбьего царства начал меняться. В самом начале юрского периода (200-197 миллионов лет назад) начинается достаточно бурная радиация костистых рыб. Они, собственно, возникли ещё в среднем триасе, но до поры до времени находились в тени других рыбьих представителей. А тут у них появился шанс на фоне значительного снижения видообразования у рыб хрящевых, лопастепёрых и ранних модификаций лучепёрых. Костистые рыбы за этот шанс уцепились всеми плавниками и не прогадали. В дальнейшем их видовое разнообразие, занимаемые экологические ниши и общая биомасса только увеличивались. Сейчас это более 90% всех видов рыб, а по биомассе, пожалуй, и все 99 будет! Уже к середине юрского периода в морях и реках проживают представители почти всех современных отрядов этой группы и немало представителей отрядов к нашему времени вымерших. Таких, к примеру, как пахикормообразных и ихтеодектид. И далеко не все эти рыбы были небольшого и среднего размеров. Некоторые вырастали реальными гигантами. Среди вышеупомянутых пахикормообразных своими статями выделялся лидсихтис. Самые преданные ему поклонники из числа учёных доводили размеры рыбки до 20-22 метров, а её предполагаемую массу до 25 тонн. Проблема была в том, хотя бы относительно полных скелетов лидсихтисов найдено не было, а современных более или менее близких родственников у него нет, а значит и нет возможности провести сравнительный анализ. По этой причине "осетра" пришлось урезать. Сейчас большинство палео-ихтиологов сошлись на средних размерах в 11-12 метров, а максимальный определили в 16,5 метров длины и 13-16 тонн массы. В любом случае, эти габариты делают лидсихтиса крупнейшей костистой рыбой за всю историю существования этой рыбьей группы. Современная луна-рыба может достигать 3-метровой длины при массе 2-2,5 тонны, а сельдяной король (он же ремень-рыба) вытягиваться до 7-8 метров, но при этом весить всего (!) 300-400 килограмм (что поделать, тощевата рыбка). В современных морях из числа рыб размерами поражают рыбы хрящевые. Мирная планктоноядная китовая акула при средних размерах в 12 метров может вырастать и до 18, и даже до 20 метров при массе свыше 30 тонн. Хищная большая белая акула вырастает до 6 метров и отъедается до 1,5-2 тонн. Естественно, жили подобные рыбки и в морях юрского периода. Более того, все современные отряды акул (скаты появились на свет позже) в середине юры уже были вполне представлены. Вот только вырастать до крупногабаритных размеров им не давали. Слишком много было в юрских морях пищевых конкурентов, да и активные теплокровные хищники, которые вторглись с суши в триасе, не давали спокойно жить. Так что предки современных акул, а также их более примитивные сёстры из числа гибодонтов, вырастали максимум до 3-метровой длины. Время акул придёт позже, когда моря в результате мел-палеогенового вымирания очистятся от хищных ящеров. Лопастепёрые рыбы тихо и планомерно вымирают. Когда-то очень успешный класс ещё держится, пытаясь цепляться за ещё незанятые экологические ниши. Часть из них уходит в пресные воды, где со временем превращается в современных двоякодышащих рыб. Часть уходит в более глубокие воды, где живут ночными набегами в верхние слои. Часть пытается уйти в крупный размерный класс (некоторые целокантообразные юрского периода вырастали до 5 метров), но им было очень трудно конкурировать с морскими ящерами. И, да, вовсе не рыбы были хозяевами юрских морей. Ими были разнообразные морские ящеры.
Морская фауна юры. Рептилии. Начало
Юрские моря были если и не переполнены, то весьма сильно наполнены недавними пришельцами с суши. Кто-то из этих пришельцев ворвался в моря в самом начале триаса, кто-то постепенно становился морскими животными в течение триасового и юрского периодов. Но все они процветали в юрских морях. И все эти пришельцы относились (возможно!) к группе диапсид, то есть являлись родичами современных им динозавров, их родственниками, принадлежавшим к группе архозавров, и весьма двоюродной (а то и более давней!) группе лепидозавроморф, а отдельные товарищи и вовсе принадлежали непонятно кому. Причём родство этих товарищей даже с самыми базальными диапсидами выглядит сомнительным. В общем, если писать достаточно коротко, то в морях юрского периода было представлено четыре основные группы ранее сухопутных ящеров, чьё происхождение и родственные связи до сих пор выглядит сомнительными, несмотря на все современные молекулярные, генетические, филогенетические и прочие исследования. То есть вполне возможно, что часть из них были не диапсиды и даже не завропсиды. А кто же они были? Современная наука правдиво отвечает: "А чёрт его знает"! Тем не менее, я эти группы назову и немного про них напишу. Это ихтиоптеригии, завроптеригии (да, по современной классификации это совсем разные "зверушки"), тестудинаты и метриоринхиды. И это ещё без тех "товарищей", которые факультативно, но часто вылезали на морские просторы.
Ихтиоптеригии - это группа рептилий, в которую входят рыбообразные ящеры - ихтиозавры, несколько похожие на них родичи из группы гриппидий и их гипотетические предки. Почему предки гипотетические? Да потому, что они до сих пор не обнаружены. У подавляющего большинства вторичноводных животных весьма чётко прослеживается линия переходных форм (привет противникам эволюции!) от условного "бегемота" (полуводная форма) к условному "тюленю" (выходящему на сушу только для отдыха и размножения) и далее к условному "киту" (полностью водному животному). В нашем же случае все найденные ископаемые останки ихтиоптеригий (даже самые древние) классифицируются однозначно как полностью водные животные. Вполне возможно, что находки промежуточных форм ещё будут. Ведь вполне возможен вариант, что ихтиоптеригии эволюционировали где-то локально (причём весьма узко). Аналогичная ведь ситуация произошла с предками современных китов, чья эволюция первоначально шла на сравнительно небольших (если сравнивать со всем земным шариком) побережьях Индостана. В юрском периоде ихтиоптеригий представляли уже только и исключительно ихтиозавры. Другие, более примитивные формы, отошли в мир иной даже не дожидаясь триасово-юрского вымирания. И в первой половине юры ихтиозавры были истинными владыками морей, которые загнали остальных достаточно крупных позвоночных и беспозвоночных в довольно ограниченные экологические ниши. Себе ихтиозавры оставили нишу скоростных и успешных хищников. Сверх-гигантов, правда, в юрском периоде уже не существовало. 18-метровый шонизавр и 20-метровый шастазавр остались в далёком триасе. Но зато крупные ихтиозавры юры (вроде 12-метрового темнодонтозавра) были абсолютными хищниками первой половины периода, которые не ограничивались рыбой и головоногими моллюсками, но и нападали на немногим более мелких ихтиозавров.
Добавлю, что все ихтиоптеригии обладали эвриапсидным строением черепа. То есть у них было одно височное отверстие, как у синапсид, а не два (как у диапсид), но образовано оно было другими костями и не совсем там, где у синапсид находится. Эвриапсид долгое время считали четвёртой эволюционной ветвью амниот (и сейчас, к слову, многие учёные считают), которая отделилась от прочих (базальных амниот-анапсид, синапсид и диапсид) ещё в конце карбона. Ныне в большем почёте версия, что эвриапсиды - это диапсиды, которые избавились от одной лишней дырки в черепе. На мой, кстати, взгляд это сделано просто для удобства, чтобы не множить сущностей сверх нужного. А так-то эвриапсидная ветвь амниот вполне имеет право на существование. Эх, жалко нельзя сравнительный генетический анализ провести за неимением нужных образцов и отсутствием представления, кто из ныне существующих животных может быть прямыми потомками эвриапсид (скорее всего, никто!)! Время владычества ихтиозавров в юрских морях продолжалось до тех пор пока на их пути не встали завроптеригии - морские ящеры (к слову, из тех же эвриапсид), которые не собирались полностью "обрыбиваться", но оказались весьма и весьма приспособлены к водной среде. Основным их движителем являлся не хвост (с помощью передних ласт-плавников), а все четыре конечности, превращённые в гребущие ласты. Собственно, запроптеригии появились в морях ещё в триасовом (плезиозавриды) и в начале юрского (плиозавриды) периодах, но долгое время не играли никакой особой роли в биоценозах юрских морей первой половины периода. Так, что-то рыбо- и моллюскоядное, но не сильно крупное, а потому мало на что-то претендующее.
Но к середине юры завроптеригии подросли и начали активно выдавливать ихтиозавров из их привычных ниш. Некоторые короткошеие плиозавриды подросли настолько, что вполне могли претендовать на звание крупнейших морских хищников наряду с мозазаврами мелового периода и современными кашалотами. Часть этих "товарищей" вырастали до 22-23 метров и могли весить до 30 тонн. К слову, размеры лиопревродона (25 метров и более 40 тонн), показанного в одной из серий "Прогулок с динозаврами", были в том сериале явно преувеличены. Типичные лиопревродоны лишь слегка перерастали 11-12 метров. Но их родичи вполне себе вырастали свыше 20 метров. Завроптеригии делились на две весьма отличающихся друг от друга внешне группы. А об этих двух группах (а также о прочих злобных ящерах юрских морей) расскажу в следующей статье цикла.
Морская фауна юры. Рептилии. Продолжение
В морях юрского периода плавало немало рептилий, которые занимали самые разные экологические ниши, но предпочитая ниши средних и крупных хищников. Плезиозавриды - это длинношеие рептилии с маленькими головами и довольно длинным хвостом (пресловутая Несси, которая часто чудится уважаемым главам шотландских семейств после посещения паба, к ним и относится). Их размеры крайне редко превышали 11-12 метров (за исключением почти 20-метровых эласмозаврид), а чаще были в диапазоне 5-7 метров (и это с учётом весьма длинной шеи и нехилого такого хвоста). Само собой, что при такой грацильности весили плезиозавриды сравнительно немного. Редко какой экземпляр на своей рыбной (преимущественно) диете раскармливался до тонны или чуть больше. Плиозавриды были более массивными, более корпулентными и обладающими весьма большими плавниками-ластами, которые могли достигать и свыше половины длины животного (задние были сильно короче). Эти животные обладали большой головой (до четвёртой части общей длины тела), короткой малоподвижной шеей и массивным толстеньким туловищем. Передвигались плиозавры в водной толще подобно современным горбатым китам, буквально "летая" благодаря взмахам своих весьма длинных передних конечностей - ласт. Практически все плиозавриды были достаточно крупными животными, которые в юрском периоде не опускались ниже меток в 6-7 метров и 7-10 тонн (это в меловом часть плиозаврид сумели всё-таки помельчать). Типичным для плиозаврид считается позднеюрский плиозавр. Это целый род крупных (до 13-14 метров и до 16-18 тонн) рептилий. Эти "летающие" (благодаря своим длинным передним конечностям - ластам) в водной толще ящеры были активными быстрыми хищниками юрских морей. Именно они (а не более медленные и мелкие плезиозавры) сместили ихтиозавров с пьедестала апекс-хищников во второй половине юрского периода.
На фоне всех вышеописанных морских гигантов явно теряются тестудинаты. В юрском периоде они были ещё сравнительно небольшими и только начинали прощупывать нужные им экологические ниши, хотя первые представители этой весьма интересной группы животных появились ещё в триасе. Если говорить совсем просто, то юрские тестудинаты - это предки и родственники современных черепах. С черепахами, собственно, сейчас большая проблема. Даже генетические (самые точные на данный момент) исследования не дают однозначный ответ о происхождении и родстве с другими линиями амниот. Ныне принята примирительная теория об их происхождении. Решено считать их диапсидами, лишёнными в процессе эволюции предусмотренных изначальной конструкцией черепа височных отверстий. Чтобы хоть как-то прояснить систематическое положение тестудинат их объединили с архозаврами в группу архелозавров. Стоит, конечно, сказать, что группа это крайне искусственная. Близкое родство черепах с крокодилами, птерозаврами, динозаврами и птицами (которые и составляют группу архозавров) до сих пор не подтверждено.
Водные пространства тестудинаты начали осваивать в начале юрского периода. Но первоначально это были только и исключительно пресноводные амфибийные (то есть полуводные) формы. В моря юрские черепахи отправились уже ближе к концу периода около 155 миллионов лет назад. Первоначально они были прибрежными, обладали конечностями вполне приспособленными для передвижения по суше. Собственно, прибрежная прибойная зона была сравнительно безопасна для этих сравнительно небольших (до 70 сантиметров по максимальным размерам карапакса - верхнего панциря), малоподвижных животных. Туда (в эту зону) почти не заплывали морские хищники и почти не забредали хищники сухопутные. В это время уже появляются предки современных бокошейных и скрытошейных черепах, а под самый занавес периода появляются протостегиды - настоящие морские черепахи. Эти "товарищи" уже обладали гребущими передними ластами, кожистым панцирем и неплохими размерами до 1,5 метров по длине панциря и немногим меньше по размаху ласт. К слову, протостегиды не являются предками современных морских черепах, а сестринской им линией, полностью вымершей одновременно с нептичьими динозаврами на границе мелового и палеогенового периодов.
Ну и, наконец, единственными архозаврами юрского периода, которые не только сунулись на морские просторы, но и приобрели массу адаптаций для подобного образа жизни, стали метриоринхиды. Метриоринхиды - это своего рода морские крокодилы юрского периода. Предкам современных крокодилов - крокодиломорфам, метриоринхиды приходятся сестринской группой. Передние конечности сильно уменьшились в размерах и превратились в рули-плавники. Конечности задние превратились в мощные гребные ласты. Длинный рептильный хвост приобрёл "рыбообразную" форму, совсем как у ихтиозавров. Представители большинства видов никогда в жизни не выходили на сушу, будучи подобно ихтиозаврам, плезиозаврам и плиозаврам живородящими (вернее, яйцеживородящими) организмами. На суше им было делать явно нечего, а вот рыбы и головоногих моллюсков в море вполне хватало и для таких не слишком больших (до 3,5-4 метров) рептилий.
Парк юрского периода. Амфибии
Можно долго спорить о том, какие группы живых существ больше всего пострадали в результате триасово-юрского вымирания. Досталось, в принципе, всем, кому-то больше, кому-то меньше. Но есть две группы, которым в результате этого вымирания досталось больше, чем другим. Интересным, кстати, является тот факт, что эти две группы прямо конкурировали за главенство в пресных водах (хотя одна из них и на суше претендовала на первенство). Речь, конечно, о псевдозухиях (и о крокодиломорфах в их числе) и об амфибиях. Амфибии в триасовом периоде переживали свой "серебряный" век. На общее главенство они, само собой, уже не претендовали, но вот на роль крупных "монстров" и альфа-хищников озёр, рек и болот годились вполне, успешно "воюя" за эту нишу с крокодиломорфами.
Триасово-юрское вымирание весьма больно ударило, что по тем, что по другим. И если крокодиломорфы единственными из псевдозухий хоть как-то в юре и мелу цеплялись за главенство в отдельных биоценозах (и иной раз вполне успешно: редко какой динозавр осмеливался подойти к водоёму, в котором обитал огромный саркозух), то амфибии впали в эволюционное уныние и полный декаданс. Времена огромных, да даже и средних размеров лабиринтодонтов ушли, пропали во тьме прошедших веков. Вымирание пережили лишь некоторых родов, но и они изрядно измельчали (сами амфибии, а не систематические единицы), а потом тихо вымерли к концу юрского периода. И тут бы и пришёл конец представителям некогда великого класса, если бы ещё в триасе (а по ряду научных данных - в перми) некоторые его представители ушли в малый размерный класс и развили у себя ряд интересных адаптаций и приспособлений. Можно долго ломать копья по поводу происхождения и ранней эволюции современных "образцов" амфибий - Лиссамфибий или Беспанцирных (сам на ранних сроках существования канала посвятил этому несколько статей). Но несомненно одно: именно в юрском периоде появляются самые первые палеонтологически доказанные "образцы" хвостатых саламандр, бесхвостых лягушек и змеевидных червяг. Можно, конечно, вспомнить пермского геробатрахуса, который нёс в себе черты как древних лабиринтодонтов, так и одновременно хвостатых и бесхвостых своих возможных потомков, но это всё-таки палеонтологическое исключение. Филогенетические исследования выводят происхождение Хвостатых Лиссамфибий незадолго до Великого пермско-триасового вымирания, Безногих - из начала триаса, а Бесхвостых - не позднее середины триаса. Реальные, правда, находки датируются не ранее первой половины юрского периода (Хвостатые), середины периода (Безногие) и начала второй половины периода (Бесхвостые). В общем, именно в юрском периоде амфибии повернули в сторону своего современного пути, отказавшись полностью от крупного размерного класса, лишь частично будучи представлены в среднем, но весьма широко в малом. Хвостатые (пра-образы нынешних саламандр и тритонов) начали осваивать быстрые проточные пресные воды и влажную лесную подстилку. Предки нынешних червяг предпочли темноту и влагу подземелий и той же лесной подстилки. А самая успешная современная группа амфибий, хотя и стремительно вымирающая последние 100-200 лет, Бесхвостые - начали работать над мощными прыжками пра-лягушек, наземной "высокой" (с почти выпрямленными лапами) походкой пра-жаб и весьма успешными попытками приспособиться к почти наземной жизни. Но юрский период стал только началом становления Лиссамфибий.
Парк юрского периода. Псевдозухии
Кто такие псевдозухии? Псевдозухии ("притворяющиеся крокодилами" или "ложные крокодилы") - таксономическая группа архозавров, сестринская по отношению к той, которая объединяет динозавров (включая птиц) и птерозавров. Название, кстати, совсем неправильное, так как современные и вымершие крокодилы вполне себе в эту группу вписываются. Разделились эти две группы архозавров ещё в самом раннем триасе, если не в поздней перми. Но если авеметатарзалии (птерозавры + динозавры) в юрском периоде процветали, то время процветания псевдозухий осталось позади - в периоде триасовом. Вторая половина триаса - это время владычества псевдозухий над биоценозами суши. Они господствовали в крупном размерном классе, составляя там до 90% хищников и свыше 60% растительноядных. Мало кому давали разгуляться в средних размерах. Только на малый (для позвоночных) размерный класс эти "ребята" не претендовали. Псевдозухии имели все основания претендовать на лидерство. Они были теплокровными, щеголяли на выпрямленных под туловищем конечностях (изначально на двух, но потом опустились на четыре конечности), а, следовательно, были быстрыми, ловкими, а (учитывая их размеры!) значит весьма опасными! Вот только очень сильно подкосило их триасово-юрское вымирание! Многочисленные и разнообразные группы псевдозухий его банально не пережили. От всего многообразия остались только крокодиломорфы. Выжила эта достаточно разнообразная группа по двум причинам. Те крокодиломорфы, которые обитали на суше (этакие длинноногие рептильные "собачки"), выжили благодаря относительно небольшим размерам (небольшой животинке в трудные времена постапокалипсиса требуется меньше пищи). Повезло и тем, кто успешно в триасе "отвоёвывал" у амфибий рыбоядные ниши пресноводных обитателей. Кстати, интересно то, что современные крокодилы произошли от юрской сухопутной, а не пресноводной ветви.
Первичная же пресноводная ветвь крокодиломорф, хотя и пережила вымирание, но достаточно быстро отправилась в иной мир уже в начале юрского периода. Пресные воды юры стремительно заселили потомки сухопутной (мелкой) ветви крокодиломорф. Эти же потомки исключительно сухопутных животных попробовали на вкус не только пресную, но и морскую воду. Юрская история выживших крокодиломорф началась со сфенозухий. Данные "товарищи" появились на свет ещё на исходе триаса, но расцвета своего достигли в юрском периоде. Это были ещё полностью наземные грацильные (очень изящные) четвероногие животные. Большинство из них были сравнительно небольшими, вырастая до 2 метров в длину и достигая 50-60 килограмм веса. Только ранне-юрский редондавенатор достигал 4 метров и почти 200 килограмм. Напоминали они крупных чрезвычайно худых длинноногих ящериц с удлинённой зубастой мордой, с остеодермовыми щитками вместо чешуи. Длинные ноги этих животных располагались не по рептильному (по бокам туловища как у современных крокодилов), а под туловищем. Не меньшим распространением в ранней юре могли похвастаться и протозухии ("древние крокодилы"). Происходили они то ли от сфенозухий, то ли от какой-то неустановленной пока группы. Эти "товарищи" были ещё вполне себе сухопутными, но уже начали избавляться от активной "бегательной" традиции сфенозухий. Именно протозухии начали первыми среди крокодиломорфов избавляться от "архозавровых" черт вроде выпрямленных под туловищем ног и связанных с этим положением движениями. Заодно начали они избавляться от активного мощного метаболизма и даже начали менять свою анатомию в плане сердечно-сосудистой системы. Связано это было, скорее всего, с тем, что крокодиломорфы уже были банально вытеснены ближе к неаппетитным пресным водам.
Вытеснялись они не только поближе к пресным водам. Часть из них уходила и в моря. Полностью морскими обитателями стали в юрском периоде близкие родичи крокодиломорфов - метриоринхиды. Крокодиломорфы же в лице "морских крокодилов" - талоттозухий, полностью морскими ещё не стали. Хотя их лапы уже превратились в ласты и даже хвост приобрёл облик типично водных животных, но, тем не менее, талаттозухии юрского периода периодически выползали на сушу для отдыха и размножения. И только в начале мелового периода приобрели специализации полностью водных животных (яйцеживорождение или почти настоящее живорождение в частности). Талаттозухии даже в юрском периоде были "животинками" немаленькими, достигая 4,5-5 метров в длину и почти в тонну весом. В меловом ещё больше подросли, но это уже другая история. В начале юрского периода появляются мезозухии. Это уже почти крокодилы, которые, правда, ещё не отказываются от наземного образа жизни, хотя и уже отказались от многих эволюционных достижений своих архозавровых предков. У крокодиломорфов начала лидировать деэволюция. Мезозухии уже почти полностью отказались от теплокровности предков (как и у современных крокодилов "тёплая кровь" начинает проявлять себя только во время "рывков" на суше, в остальное время никак не проявляя себя) и от выпрямленного положения конечностей (они снова оказались врастопырку, как и у ранних предков архозавров). Именно мезозухии снова из архозавров стали властителями пресных вод в середине юрского периода после длительного периода безвластия или властвования непонятно кого. Мезозухии просуществовали почти до плейстоцена, иной раз выдавая поистине гигантские формы (миоценовый южноамериканский пурусзавр вырастал до 12,5 метров и весил до 6 тонн). А к концу юрского периода появляются уже и "настоящие" крокодилы (эузухии). Но их время в качестве владык пресных вод в этом периоде ещё не пришло. Но зато в следующем меловом даже крупные динозавры боялись подходить к берегам водоёмов, в которых обитали крупные мезозухии или эузухии.
Парк юрского периода. Птерозавры
Птерозавры - это эволюционные двоюродные братья динозавров, относящиеся к одной с ними кладе орнитодир. Только в отличии от динозавров птерозавры предпочли воздушную среду обитания, первыми из всех позвоночных обретя способность к машущему полёту. Сделали они это ещё в конце триасового периода. Динозавровая родня в виде птиц присоединилась к ним только в конце периода юрского, а млекопитающие и вовсе начали махать своими крыльями только в кайнозое, когда мел-палеогеновое вымирание "ссадило" с неба всех птерозавров и большинство птиц. Да и сами птицы начали хоть как-то теснить птерозавров из занятых ими экологических ниш только во второй половине периода мелового. Но это уже другая история, а в периоде юрском никто не мог поспорить с королями неба - птерозаврами. Весь юрский период шёл эволюционный спор между двумя птерозавровыми моделями. Между архаичной, но вполне действующей рамфоринховой, и прогрессивной птеродактилиевой. Самое интересное, что после достаточно глубоких исследований и отхода от представлений о птерозаврах как "летающих крокодилах" (ну или летающих "динозаврах"), архаичные птерозавры (рамфоринховые) внезапно оказались весьма схожими внешне с рукокрылыми млекопитающими. И не только внешне, но и экологической нишей (насекомоядные и рыбоядные "зверюги"). В общем, этакие летучие собаки, мыши и лисицы, только яйцекладущие и с длинными хвостами. Особое сходство с рукокрылыми рамфоринховым птерозаврам придавали волосоподобные нити - пикнофибры, которые покрывали тела, крылья и головы представителей большей части видов. Эти самые пикнофибры сначала больше напоминали шерсть млекопитающих, чем что-то типично архозавровое.
Главными отличительными особенностями рамфоринховой "модели" были малая пневматизация (наполнение воздушными мешками) скелета, длинный "рептильный" хвост и длинные (у большей части видов, но далеко не у всех) челюсти, буквально напичканные зубами. Плюсом к этому шли достаточно короткие крылья с невеликим размахом и относительно небольшой прочностью, что выдавало в рамфоринхообразных не слишком-то и умелых летунов. К середине юрского периода данная "модель" птерозавров распространилась по всей быстро распадающейся Пангее и образовала как минимум три экосистемных группы. Прямые потомки первых триасовых птерозавров (самая примитивная птерозавровая ветвь) преобразовались в наземно-воздушных небольших хищников вроде раннеюрского диморфодона. Большую часть времени они проводили на земле, на стволах и в кронах деревьев, а вот летали не так уж и часто. Вторая группа специализировалась на добыче летающих насекомых. Эти "товарищи" (например, представители семейства анурогнатид) максимально напоминали помесь вышеупомянутых летучих мышей с совами. То есть "устройство"-то у них было архаичное, но внешний вид (да и поводки тоже!) вполне прогрессивным (до такого после вымирания этой группы животных додумались только рукокрылые около 60 миллионов лет назад). Третьей экосистемной группой рамфоринхообразных стали "настоящие" рамфоринхи. Самые из рамфоринхообразных хвостатые, крылатые, длинночелюстные и зубастые. Эти по жизни промышляли рыбалкой, хотя и сами нередко попадали на завтрак, обед и ужин разным крупным видам рыб. Но зато они первыми из летающих позвоночных освоили способ рыбалки "с лёту" (едва заметное "задевание" водной поверхности) и с нырянием. К слову, гораздо более прогрессивные птеродактилеобразные этот способ "рыбалки" так и не смогли освоить. Зато они гораздо лучше научились летать машущим полётом, а планирующий полёт превратили не в развлечение (как было у шаровоптериксов и будет у белок-летяг), а в искусство (как у нынешних крупных летающих птиц).
Птеродактилеобразные появляются в самом начале юрского периода, но повсеместно начинают теснить своих родичей только во второй половине этого самого периода. У них сильно уменьшился хвост (прямо-таки ассоциации с эволюцией птиц), сильно уменьшились челюсти. В челюстях начало уменьшаться количество зубов. Причём так стремительно, что к концу юрского периода появились совсем беззубые виды, которые начали щеголять вполне себе таким "птичьим" клювом. Кроме того, часть птеродактелеид обзавелись роскошными головными гребнями. До сих пор непонятно, были ли они свойственны всем особям для общей центровки тела или служили вторичным половым признаком для самцов. Ну и скелет у птерозавров "новой формации" стал максимально пневматизированным, то есть облегчённым, а их пикнофибры стали намного меньше похожи на шерсть и намного больше на перья. Первоначально две "модели" птерозавров были представлены примерно одинаковыми экземплярами, занимающими примерно одни и те же экологические ниши. И если первую половину юры шла примерно равная эволюционная борьба, то во второй половине периода птеродактилеобразные однозначно вышли вперёд. Только редкие рамфоринхи пережили юрский период и перешли в период меловой (сохранились только "болотные" виды). А вот первоначально небольшие и не так уж и многочисленные птеродактили вступили в меловом периоде в эпоху своего расцвета. И в итоге именно они стали самыми большими живыми существами, поднимающимися в воздух.
Спасибо за чтение
Вернуться к книге